
Flussdiagramm
Ohne Titel
Inhalt des Flussdiagramms
Mecanismos de acción
inhibidores de la síntesis de la pared bacteriana
Inhibidores de la fase citoplásmica
Inhibidores de la fase de transporte de precursores
Antimicrobianos que bloquean mecanismos de resistencia
Antibióticos activos en la membrana citoplásmica
Inhibidores de la síntesis proteica
Inhibidores de la fijación del aminoacil-ARNt al ribososma
Inhibidores de la elongación
Antibióticos que actúan en el metabolismo o la estructura de los ácidos nucleicos
Actúa inhibiendo la piruviltransferasa, enzima causante de la adición del fosfoenolpiruvato a la molécula de UDP-NAG para formar el precursor UDP-NAM.
Fosfomicina
Actúa sobre la base de su analogía estructural con la D-alanina, inhibiendo competitivamente la actividad de la L-alanina-racemasa (transforma L-ala en D-ala) y la D-alanin-D-alanina-sintetasa (forma dímeros de D-ala).
Cicloserina
Bacitracina
Mureidomicinas
se une al transportador y bloquea su defosforilación, e impide que pueda utilizarse de nuevo en el transporte de los polímeros lineales de disacárido-pentapéptido a través de la membrana citoplásmica, hasta la pared en formación
se unen competitivamente con el transportador lipídico, bloqueando el transporte de los precursores a través de la membrana citoplásmica
Inhibidores de la organización estructural de peptidoglucanos
Glucopéptidos
Los glucopéptidos (vancomicina y teicoplanina) actúan en un paso previo al de los β-lactámicos. Impiden la transferencia del disacárido pentapéptido, unido al transportador lipídico de la membrana citoplásmica, al aceptor de la pared celular
Beta lactámicos
presencia de un anillo lactámico en su estructura, con un oxígeno en posición β con respecto a un nitrógeno, inhiben las fases finales de la síntesis del peptidoglucano, en la que intervienen activamente las enzimas PBP
hay diferencias en la actividad de los diferentes β-lactámicos, y ello se debe principalmente a 3 factores: rapidez en la difusión de los antibióticos al espacio periplásmico, resistencia a las β-lactamasas, capacidad para escapar a los sistemas de expulsión activa y afinidad variable por las distintas PBP
inhibidores de β-lactamasas de serina, incluyen ácido clavulánico, sulbactam y tazobactam. Carecen de acción antibacteriana intrínseca de pero se unen irreversiblemente a algunas β-lactamasas, protegiendo de su acción a los antibióticos β-lactámicos.
Polimixinas
Son antibióticos polipeptídicos, cíclicos y policatiónicos, con una cadena de ácido graso unido al péptido y se comportan como detergentes catiónicos. Tiene una parte hidrofílica con alta carga positiva que se une a la superficie de la membrana. Por otro lado, el extremo lipofílico se une a los fosfolípidos de la membrana. Como resultado se desorganiza la estructura de la membrana y aumenta su permeabilidad, con la pérdida de metabolitos esenciales
Daptomicina
Actúa en la membrana citoplásmica de las bacterias grampositivas, sin entrar en la célula, y se produce una rápida despolarización de la membrana con alteración del potencial eléctrico y salida de iones potasio exterior. Produciendo un bloqueo de la síntesis proteica y de ácidos nucleicos, que provoca la muerte bacteriana
Ionóforos y formadores de poros
Los ionóforos incorporan cationes monovalentes en su interior, y les permite cruzar la bicapa lipídica. La penetración elevada de potasio altera el potencial eléctrico y el gradiente químico existente en la membrana, alterando su función
Los dormadores de Poros se acomodan una sobre otra, enroscándose y formando un túnel que atraviesa la membrana, constituyendo un poro que permite el paso selectivo de moléculas según su tamaño y características.
Inhibidores de la fase de activación
Mupirocina
Antibiótico bacteriostático que inhibe competitivamente la enzima isoleucil-ARNt sintetasa, con lo cual no puede incorporarse el aminoácido isoleucina al péptido en formación y la síntesis de proteínas se interrumpe
Inhibidores del inicio de la sintesis proteica
Oxazolidinonas
inhiben la síntesis proteica e impiden la formación del complejo de iniciación 70S, formado por formilmetionil-ARNt, ARNm, diversas proteínas y las subunidades ribosómicos 30S y 50S
Aminoglucósidos
Tienen su acción principalmente en la subunidad 30S, uniendose a diferentes proteínas S y al ARN 16S. Bloquean la actividad normal del complejo de iniciación, impiden el inicio de la síntesis y provocan también una lectura errónea del ARNm
Tetraciclinas
Penetran en el citoplasma por un proceso dependiente de energía y se unen de forma reversible a la subunidad 30S del ribosoma (proteínas S7, S14, S19), bloqueando el acceso de los complejos aminoacil-ARN-t, e impidiendo la continuación de la síntesis proteica
Anfenicoles
El cloranfenicol y su derivado, el tiamfenicol, son antibióticos bacteriostáticos que bloquean la síntesis proteica bacteriana uniéndose reversiblemente a la proteína L16 localizada en la subunidad 50S
Lincosamidas
Actúa inhibiendo la síntesis proteica tras unirse reversiblemente a la subunidad 50S del ribosoma, en un lugar próximo al del cloranfenicol o los macrólidos, impidiendo la acción de la peptidiltransferasa
Macrólidos y cetólidos
Se unen de forma reversible al dominio V del centro peptidiltransferasa, en el ARNr 23S de la subunidad 50S del ribosoma, interfiriendo así el proceso de elongación de la síntesis proteica.
Estreptograminas
bloquean la acción de la peptidiltransferasa en diferentes puntos
Rifamicinas
Inhiben la síntesis de ARN ribosómico y mensajero al bloquear la subunidad beta de la ARN polimerasa ADN-dependiente bacteriana codificada por el gen rpoB
Quinolonas
inhiben la síntesis bacteriana de DNA, siendo su blanco la topoisomerasa II
Nitroimidazoles
penetran fácilmente en el citoplasma por difusión pasiva y allí el grupo NO2 del anillo imidazólico, que se comporta como aceptor de electrones, se reduce por nitroreductasas bacterianas del metabolismo anaerobio, liberándose radicales nitritos que dañan el ADN por oxidación.
Bloqueo de la síntesis de factores metabólicos
Sulfamidas
diaminopirimidinas
compiten por la enzima dihidropteroatosintetasa, impidiendo así la formación de ácido dihidropteroico, precursor del ácido fólico
compiten por la enzima dihidrofolatoreductasa que cataliza la conversión de ácido dihidrofólico en ácido tetrahidrofólico
Mecanismos de resistencia
Son los mecanismos y capacidad de la bacteria para inhibir la acción de los fármacos o modificar estructuras.
Resistencia adquirida
Se encuentran en microorganismos que presentaban inicialmente sensibilidad a
antibióticos pero, por diversos mecanismos han adquirido la capacidad de
defensa.
Mutaciones cromosómicas: Hay cambios en la secuencia genómica que facilita
la resistencia. Las mutaciones se obtienen por descendencia la cual es
espontánea e irreversible.
Resistencia extracromosómica: Se produce por la integración de plasmidos,
transposones e integrones en el material genético de la célula receptora
Disminución de la penetración del antibiótico al lugar
de acción
El microorganismo impide que el antibiótico atraviese la membrana
externa a través de la alteración del tamaño de los poros de la membrana, excluyendo al antibiótico.
Modificación de la unión del antibiótico a la proteína fijadora de
penicilinas:
Se puede deber a una hiperproducción de PBP, laformación de una nueva PBP, modificación de una PBP existente por
recombinación o una mutación puntual
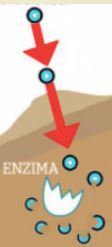
Modificación del antibiótico por enzimas
Las B-Lactamasas,inactivan los antibióticos por hidrólisis del anillo B-Lactámico de los fármacos. También, pueden ocurrir procesos de acetilación, fosforilación, adenilación y acetilación del antibiótico
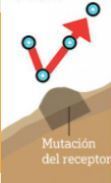
Mutación del receptor
Ocurre si el receptor muta, lo que
impide la vinculación con el antibiótico y afinidad entre el
receptor y el fármaco.
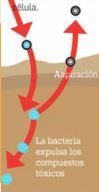
Expulsión del antibiótico
Las bacterias son capaces de
rechazar los antibióticos por aspiración fuera de la célula
Mecanismos de resistencia
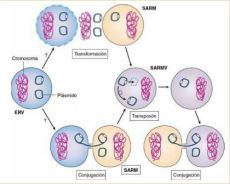
por transferencia de ADN
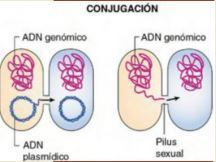
Es un apareamiento e intercambio de
información entre una bacteria donante y otra bacteria receptora. La información es un plásmido que tiene mecanismos de resistencia, el cual es transferido por un pili sexual e
integrado en el ADN de la bacteria donante. La bacteria donante se replica n veces, formando colonias de bacterias que tienen mecanismos de defensa transferidos por el pili.
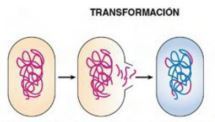
Es la captación activa e incorporación de
ADN exógeno. La célula donante envejece o sufre lisis, liberando material genético al medio externo, dicho material genético tiene mecanismos de resistencia y es incorporado poruna célula receptora de la misma especie u otra.
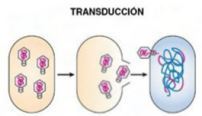
Es la transferencia de la información genética
de una bacteria por medio de un bacteriófago. La célula donante es infectada por un virus el cual tiene mecanismos de resistencia a los antibióticos. El bacteriófago enferma a la bacteria la cual se lisa, liberando bacteriófagos los cuales se transfieren a otra célula y obtienen el gen de resistencia y lo
incorporan en su ADN.
La transposición del plasmido que contiene un gen de resistencia se puede insertar en un plasmido de resistencia antibiótica múltiple. El nuevo plasmido se propaga a otras células por conjugación, generando resistencia a los
antibióticos.
Conjugación
Transducción
Transposición:
Transformación
Bibliografia
Calvo, J., & Martínez-Martínez, L. (2009). Mecanismos de acción de los antimicrobianos. Enfermedades infecciosas y microbiología clínica, 27(1), 44-52.
Brunton Laurence L., Lazo John S., Parker Keith L. “Goodman & Gilman. Las bases farmacológicas de la Terapéutica”. Undécima Edición. McGraw Hill. 2006.
Informationen
- Beschreibung
- Flussdiagramm am Ohne Titel, erstellt von rony freire am 16/04/2022.
- Erstellt von
- rony freire
- Aufrufe
- 0
- Bewertung