
Mindmap
Señalización celular pt2
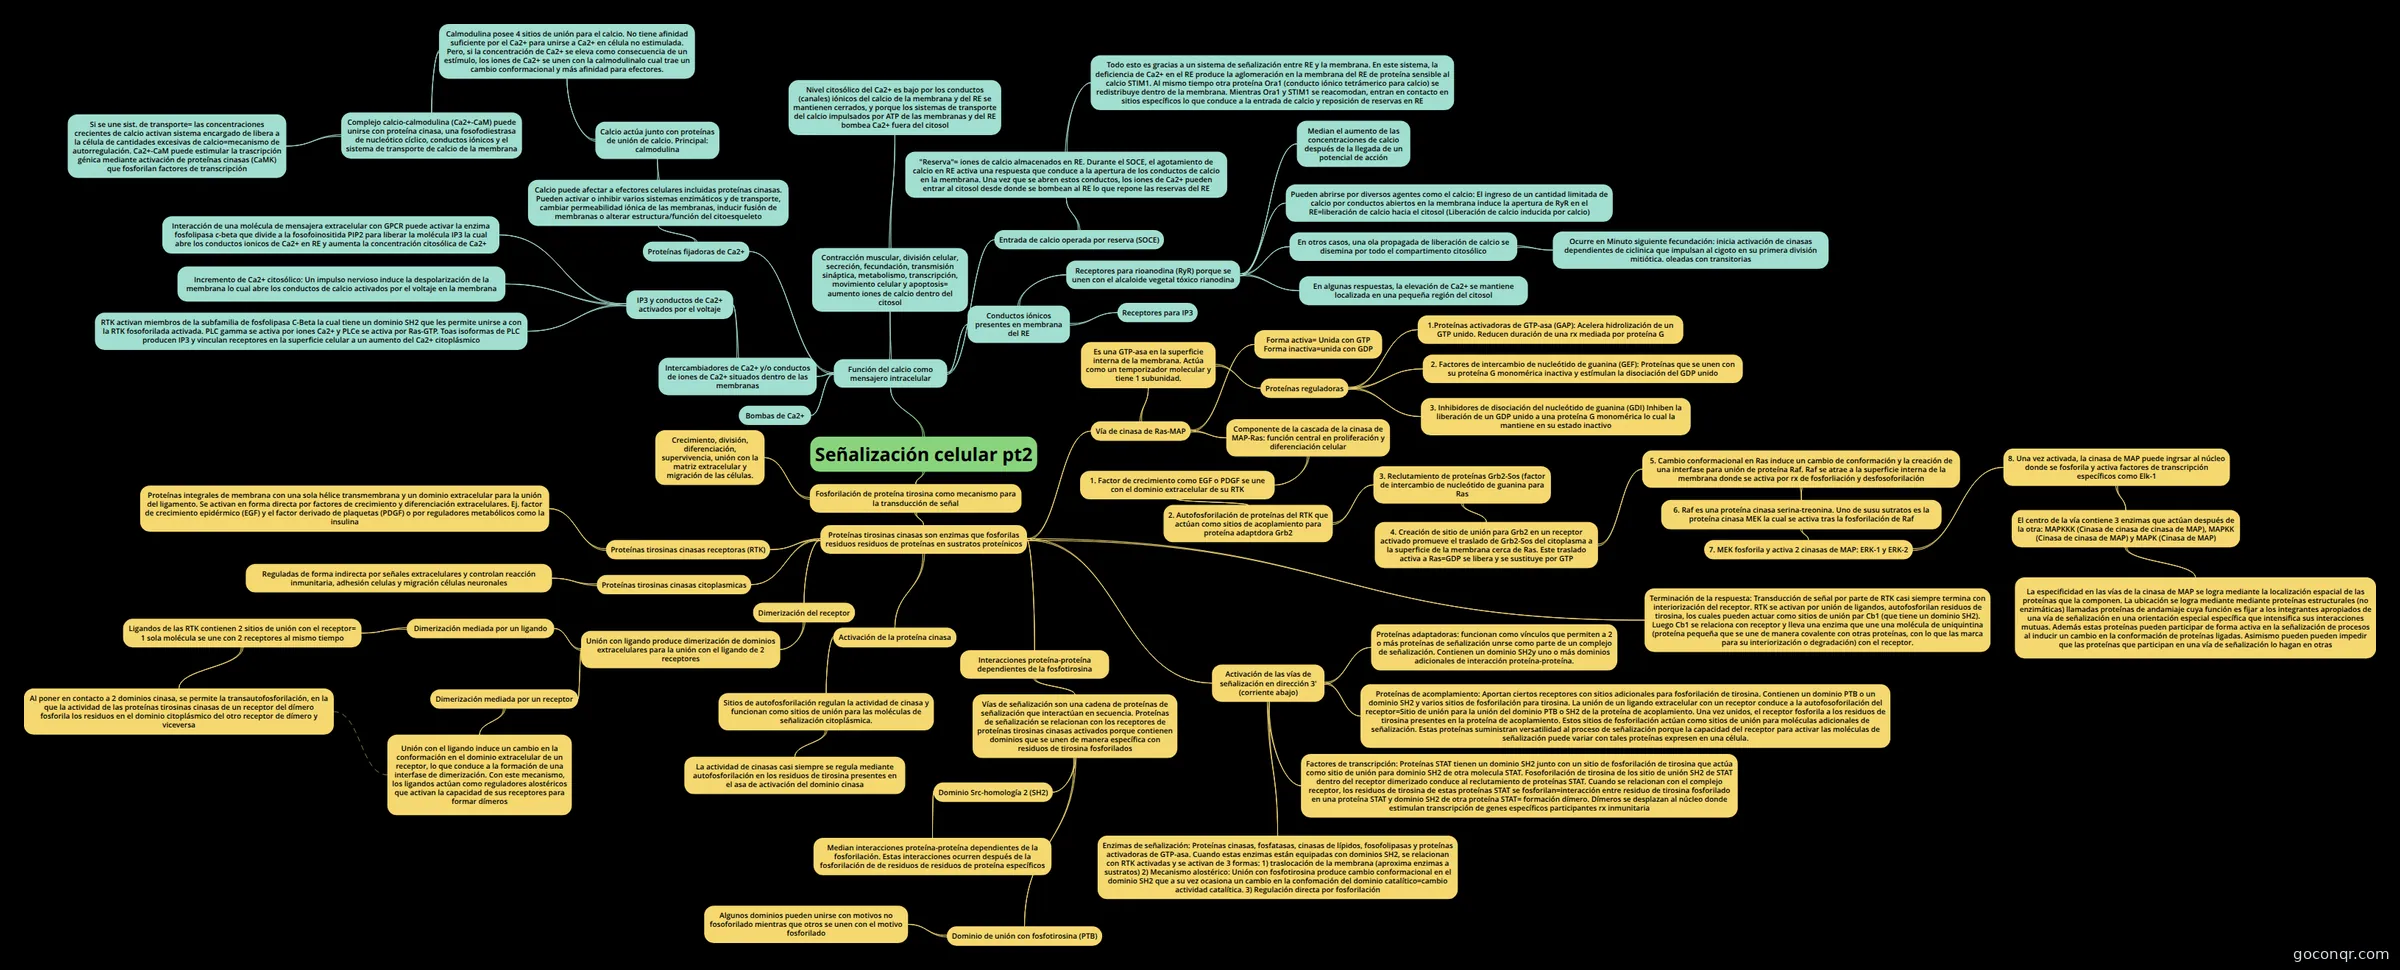
Mapa mental: Señalización celular
Inhalt der Mindmap
Señalización celular pt2
Función del calcio como mensajero intracelular
- Concentración intracelular normal=10^-7 M
- Contracción muscular, división celular, secreción, fecundación, transmisión sináptica, metabolismo, transcripción, movimiento celular y apoptosis= aumento iones de calcio dentro del citosol
- Nivel citosólico del Ca2+ es bajo por los conductos (canales) iónicos del calcio de la membrana y del RE se mantienen cerrados, y porque los sistemas de transporte del calcio impulsados por ATP de las membranas y del RE bombea Ca2+ fuera del citosol
- Bombas de Ca2+
- Intercambiadores de Ca2+ y/o conductos de iones de Ca2+ situados dentro de las membranas
- IP3 y conductos de Ca2+ activados por el voltaje
- Interacción de una molécula de mensajera extracelular con GPCR puede activar la enzima fosfolipasa c-beta que divide a la fosofoinositida PIP2 para liberar la molécula IP3 la cual abre los conductos ionicos de Ca2+ en RE y aumenta la concentración citosólica de Ca2+
- RTK activan miembros de la subfamilia de fosfolipasa C-Beta la cual tiene un dominio SH2 que les permite unirse a con la RTK fosoforilada activada. PLC gamma se activa por iones Ca2+ y PLCe se activa por Ras-GTP. Toas isoformas de PLC producen IP3 y vinculan receptores en la superficie celular a un aumento del Ca2+ citoplásmico
- Incremento de Ca2+ citosólico: Un impulso nervioso induce la despolarización de la membrana lo cual abre los conductos de calcio activados por el voltaje en la membrana
- IP3 y conductos de Ca2+ activados por el voltaje
- Conductos iónicos presentes en membrana del RE
- Receptores para IP3
- Receptores para rioanodina (RyR) porque se unen con el alcaloide vegetal tóxico rianodina
- Presentes en células del músculo-esquelético y cardíaco
- Median el aumento de las concentraciones de calcio después de la llegada de un potencial de acción
- Pueden abrirse por diversos agentes como el calcio: El ingreso de un cantidad limitada de calcio por conductos abiertos en la membrana induce la apertura de RyR en el RE=liberación de calcio hacia el citosol (Liberación de calcio inducida por calcio)
- En algunas respuestas, la elevación de Ca2+ se mantiene localizada en una pequeña región del citosol
- En otros casos, una ola propagada de liberación de calcio se disemina por todo el compartimento citosólico
- Ocurre en Minuto siguiente fecundación: inicia activación de cinasas dependientes de ciclinica que impulsan al cigoto en su primera división mitiótica. oleadas con transitorias
- Entrada de calcio operada por reserva (SOCE)
- "Reserva"= iones de calcio almacenados en RE. Durante el SOCE, el agotamiento de calcio en RE activa una respuesta que conduce a la apertura de los conductos de calcio en la membrana. Una vez que se abren estos conductos, los iones de Ca2+ pueden entrar al citosol desde donde se bombean al RE lo que repone las reservas del RE
- Todo esto es gracias a un sistema de señalización entre RE y la membrana. En este sistema, la deficiencia de Ca2+ en el RE produce la aglomeración en la membrana del RE de proteína sensible al calcio STIM1. Al mismo tiempo otra proteína Ora1 (conducto iónico tetrámerico para calcio) se redistribuye dentro de la membrana. Mientras Ora1 y STIM1 se reacomodan, entran en contacto en sitios específicos lo que conduce a la entrada de calcio y reposición de reservas en RE
- "Reserva"= iones de calcio almacenados en RE. Durante el SOCE, el agotamiento de calcio en RE activa una respuesta que conduce a la apertura de los conductos de calcio en la membrana. Una vez que se abren estos conductos, los iones de Ca2+ pueden entrar al citosol desde donde se bombean al RE lo que repone las reservas del RE
- Proteínas fijadoras de Ca2+
- Calcio puede afectar a efectores celulares incluidas proteínas cinasas. Pueden activar o inhibir varios sistemas enzimáticos y de transporte, cambiar permeabilidad iónica de las membranas, inducir fusión de membranas o alterar estructura/función del citoesqueleto
- Calcio actúa junto con proteínas de unión de calcio. Principal: calmodulina
- Calmodulina posee 4 sitios de unión para el calcio. No tiene afinidad suficiente por el Ca2+ para unirse a Ca2+ en célula no estimulada. Pero, si la concentración de Ca2+ se eleva como consecuencia de un estímulo, los iones de Ca2+ se unen con la calmodulinalo cual trae un cambio conformacional y más afinidad para efectores.
- Complejo calcio-calmodulina (Ca2+-CaM) puede unirse con proteína cinasa, una fosofodiestrasa de nucleótico cíclico, conductos iónicos y el sistema de transporte de calcio de la membrana
- Si se une sist. de transporte= las concentraciones crecientes de calcio activan sistema encargado de libera a la célula de cantidades excesivas de calcio=mecanismo de autorregulación. Ca2+-CaM puede estimular la trascripción génica mediante activación de proteínas cinasas (CaMK) que fosforilan factores de transcripción
- Complejo calcio-calmodulina (Ca2+-CaM) puede unirse con proteína cinasa, una fosofodiestrasa de nucleótico cíclico, conductos iónicos y el sistema de transporte de calcio de la membrana
- Calmodulina posee 4 sitios de unión para el calcio. No tiene afinidad suficiente por el Ca2+ para unirse a Ca2+ en célula no estimulada. Pero, si la concentración de Ca2+ se eleva como consecuencia de un estímulo, los iones de Ca2+ se unen con la calmodulinalo cual trae un cambio conformacional y más afinidad para efectores.
- Calcio actúa junto con proteínas de unión de calcio. Principal: calmodulina
- Calcio puede afectar a efectores celulares incluidas proteínas cinasas. Pueden activar o inhibir varios sistemas enzimáticos y de transporte, cambiar permeabilidad iónica de las membranas, inducir fusión de membranas o alterar estructura/función del citoesqueleto
Fosforilación de proteína tirosina como mecanismo para la transducción de señal
- Proteínas tirosinas cinasas son enzimas que fosforilas residuos residuos de proteínas en sustratos proteínicos
- Proteínas tirosinas cinasas receptoras (RTK)
- Proteínas integrales de membrana con una sola hélice transmembrana y un dominio extracelular para la unión del ligamento. Se activan en forma directa por factores de crecimiento y diferenciación extracelulares. Ej. factor de crecimiento epidérmico (EGF) y el factor derivado de plaquetas (PDGF) o por reguladores metabólicos como la insulina
- Proteínas tirosinas cinasas citoplasmicas
- Reguladas de forma indirecta por señales extracelulares y controlan reacción inmunitaria, adhesión celulas y migración células neuronales
- Dimerización del receptor
- Unión con ligando produce dimerización de dominios extracelulares para la unión con el ligando de 2 receptores
- Dimerización mediada por un ligando
- Ligandos de las RTK contienen 2 sitios de unión con el receptor= 1 sola molécula se une con 2 receptores al mismo tiempo
- Al poner en contacto a 2 dominios cinasa, se permite la transautofosforilación, en la que la actividad de las proteínas tirosinas cinasas de un receptor del dímero fosforila los residuos en el dominio citoplásmico del otro receptor de dímero y viceversa
- Ligandos de las RTK contienen 2 sitios de unión con el receptor= 1 sola molécula se une con 2 receptores al mismo tiempo
- Dimerización mediada por un receptor
- Unión con el ligando induce un cambio en la conformación en el dominio extracelular de un receptor, lo que conduce a la formación de una interfase de dimerización. Con este mecanismo, los ligandos actúan como reguladores alostéricos que activan la capacidad de sus receptores para formar dímeros
- Dimerización mediada por un ligando
- Unión con ligando produce dimerización de dominios extracelulares para la unión con el ligando de 2 receptores
- Activación de la proteína cinasa
- Sitios de autofosforilación regulan la actividad de cinasa y funcionan como sitios de unión para las moléculas de señalización citoplásmica.
- La actividad de cinasas casi siempre se regula mediante autofosforilación en los residuos de tirosina presentes en el asa de activación del dominio cinasa
- Cuando el asa de activación no está fosforilada= se obstruye sitio para unión con el sustrato= no entreada de ATP. Después de fosforilación, el asa de activación se estabiliza en una posición alejada del sitio de unión, lo que produce la activación del dominio cinasa=subunidades receptoras se forforilan una a la otra en residuos de tirosina presentes en regiones adyacentes al dominio citoplásmico. Estos sitios de autofosforilación= Sitios de unión para proteínas de señalización celular.
- La actividad de cinasas casi siempre se regula mediante autofosforilación en los residuos de tirosina presentes en el asa de activación del dominio cinasa
- Sitios de autofosforilación regulan la actividad de cinasa y funcionan como sitios de unión para las moléculas de señalización citoplásmica.
- Interacciones proteína-proteína dependientes de la fosfotirosina
- Vías de señalización son una cadena de proteínas de señalización que interactúan en secuencia. Proteínas de señalización se relacionan con los receptores de proteínas tirosinas cinasas activados porque contienen dominios que se unen de manera específica con residuos de tirosina fosforilados
- Dominio Src-homología 2 (SH2)
- Median interacciones proteína-proteína dependientes de la fosforilación. Estas interacciones ocurren después de la fosforilación de de residuos de residuos de proteína específicos
- Dominio de unión con fosfotirosina (PTB)
- Algunos dominios pueden unirse con motivos no fosoforilado mientras que otros se unen con el motivo fosforilado
- Dominio Src-homología 2 (SH2)
- Vías de señalización son una cadena de proteínas de señalización que interactúan en secuencia. Proteínas de señalización se relacionan con los receptores de proteínas tirosinas cinasas activados porque contienen dominios que se unen de manera específica con residuos de tirosina fosforilados
- Activación de las vías de señalización en dirección 3' (corriente abajo)
- Proteínas adaptadoras: funcionan como vínculos que permiten a 2 o más proteínas de señalización unrse como parte de un complejo de señalización. Contienen un dominio SH2y uno o más dominios adicionales de interacción proteína-proteína.
- Proteínas de acomplamiento: Aportan ciertos receptores con sitios adicionales para fosforilación de tirosina. Contienen un dominio PTB o un dominio SH2 y varios sitios de fosforilación para tirosina. La unión de un ligando extracelular con un receptor conduce a la autofosoforilación del receptor=Sitio de unión para la unión del dominio PTB o SH2 de la proteína de acoplamiento. Una vez unidos, el receptor fosforila a los residuos de tirosina presentes en la proteína de acoplamiento. Estos sitios de fosforilación actúan como sitios de unión para moléculas adicionales de señalización. Estas proteínas suministran versatilidad al proceso de señalización porque la capacidad del receptor para activar las moléculas de señalización puede variar con tales proteínas expresen en una célula.
- Factores de transcripción: Proteínas STAT tienen un dominio SH2 junto con un sitio de fosforilación de tirosina que actúa como sitio de unión para dominio SH2 de otra molecula STAT. Fosoforilación de tirosina de los sitio de unión SH2 de STAT dentro del receptor dimerizado conduce al reclutamiento de proteínas STAT. Cuando se relacionan con el complejo receptor, los residuos de tirosina de estas proteínas STAT se fosforilan=interacción entre residuo de tirosina fosforilado en una proteína STAT y dominio SH2 de otra proteína STAT= formación dímero. Dímeros se desplazan al núcleo donde estimulan transcripción de genes específicos participantes rx inmunitaria
- Enzimas de señalización: Proteínas cinasas, fosfatasas, cinasas de lípidos, fosofolipasas y proteínas activadoras de GTP-asa. Cuando estas enzimas están equipadas con dominios SH2, se relacionan con RTK activadas y se activan de 3 formas: 1) traslocación de la membrana (aproxima enzimas a sustratos) 2) Mecanismo alostérico: Unión con fosfotirosina produce cambio conformacional en el dominio SH2 que a su vez ocasiona un cambio en la confomación del dominio catalítico=cambio actividad catalítica. 3) Regulación directa por fosforilación
- Terminación de la respuesta: Transducción de señal por parte de RTK casi siempre termina con interiorización del receptor. RTK se activan por unión de ligandos, autofosforilan residuos de tirosina, los cuales pueden actuar como sitios de unión par Cb1 (que tiene un dominio SH2). Luego Cb1 se relaciona con receptor y lleva una enzima que une una molécula de uniquintina (proteína pequeña que se une de manera covalente con otras proteínas, con lo que las marca para su interiorización o degradación) con el receptor.
- Vía de cinasa de Ras-MAP
- 30% de canceres humanos= versiones mutantes de genes Ras. Superfamilia de más de 150 proteínas G (Rabs, Sar1, Ran) las cuales intervienen en numerosos procesos como división celular, diferenciación, expresión génica, organización del citoesqueleto, tráfico de vesículas y transporte núcleocitoplásmico.
- Es una GTP-asa en la superficie interna de la membrana. Actúa como un temporizador molecular y tiene 1 subunidad.
- Proteínas reguladoras
- 1.Proteínas activadoras de GTP-asa (GAP): Acelera hidrolización de un GTP unido. Reducen duración de una rx mediada por proteína G
- Mutación en NF1 (tipo de genes de Ras-GAP) = neurofibromatiosis 1: tumores benignos en vainas que recubren troncos nerviosos
- 2. Factores de intercambio de nucleótido de guanina (GEF): Proteínas que se unen con su proteína G monomérica inactiva y estímulan la disociación del GDP unido
- 3. Inhibidores de disociación del nucleótido de guanina (GDI) Inhiben la liberación de un GDP unido a una proteína G monomérica lo cual la mantiene en su estado inactivo
- 1.Proteínas activadoras de GTP-asa (GAP): Acelera hidrolización de un GTP unido. Reducen duración de una rx mediada por proteína G
- Proteínas reguladoras
- Forma activa= Unida con GTP Forma inactiva=unida con GDP
- Mutaciones en proteína Ras derivan tumor= evitan proteína hidrolice GTP en GDP= Ras en mod o"encendido"= Células en modo proliferativo
- Componente de la cascada de la cinasa de MAP-Ras: función central en proliferación y diferenciación celular
- 1. Factor de crecimiento como EGF o PDGF se une con el dominio extracelular de su RTK
- 2. Autofosforilación de proteínas del RTK que actúan como sitios de acoplamiento para proteína adaptdora Grb2
- 3. Reclutamiento de proteínas Grb2-Sos (factor de intercambio de nucleótido de guanina para Ras
- 4. Creación de sitio de unión para Grb2 en un receptor activado promueve el traslado de Grb2-Sos del citoplasma a la superficie de la membrana cerca de Ras. Este traslado activa a Ras=GDP se libera y se sustituye por GTP
- 5. Cambio conformacional en Ras induce un cambio de conformación y la creación de una interfase para unión de proteína Raf. Raf se atrae a la superficie interna de la membrana donde se activa por rx de fosforliación y desfosoforilación
- 6. Raf es una proteína cinasa serina-treonina. Uno de susu sutratos es la proteína cinasa MEK la cual se activa tras la fosforilación de Raf
- 7. MEK fosforila y activa 2 cinasas de MAP: ERK-1 y ERK-2
- 8. Una vez activada, la cinasa de MAP puede ingrsar al núcleo donde se fosforila y activa factores de transcripción específicos como Elk-1
- El centro de la vía contiene 3 enzimas que actúan después de la otra: MAPKKK (Cinasa de cinasa de cinasa de MAP), MAPKK (Cinasa de cinasa de MAP) y MAPK (Cinasa de MAP)
- MAPKKK= Raf (Se han descubierto 14) MAPKK= MEK (Se han descubierto 7) MAPK= ERK (se han descubierto 13)
- La especificidad en las vías de la cinasa de MAP se logra mediante la localización espacial de las proteínas que la componen. La ubicación se logra mediante mediante proteínas estructurales (no enzimáticas) llamadas proteínas de andamiaje cuya función es fijar a los integrantes apropiados de una vía de señalización en una orientación especial específica que intensifica sus interacciones mutuas. Además estas proteínas pueden participar de forma activa en la señalización de procesos al inducir un cambio en la conformación de proteínas ligadas. Asimismo pueden pueden impedir que las proteínas que participan en una vía de señalización lo hagan en otras
- El centro de la vía contiene 3 enzimas que actúan después de la otra: MAPKKK (Cinasa de cinasa de cinasa de MAP), MAPKK (Cinasa de cinasa de MAP) y MAPK (Cinasa de MAP)
- 8. Una vez activada, la cinasa de MAP puede ingrsar al núcleo donde se fosforila y activa factores de transcripción específicos como Elk-1
- 7. MEK fosforila y activa 2 cinasas de MAP: ERK-1 y ERK-2
- 6. Raf es una proteína cinasa serina-treonina. Uno de susu sutratos es la proteína cinasa MEK la cual se activa tras la fosforilación de Raf
- 5. Cambio conformacional en Ras induce un cambio de conformación y la creación de una interfase para unión de proteína Raf. Raf se atrae a la superficie interna de la membrana donde se activa por rx de fosforliación y desfosoforilación
- 4. Creación de sitio de unión para Grb2 en un receptor activado promueve el traslado de Grb2-Sos del citoplasma a la superficie de la membrana cerca de Ras. Este traslado activa a Ras=GDP se libera y se sustituye por GTP
- 3. Reclutamiento de proteínas Grb2-Sos (factor de intercambio de nucleótido de guanina para Ras
- 2. Autofosforilación de proteínas del RTK que actúan como sitios de acoplamiento para proteína adaptdora Grb2
- 1. Factor de crecimiento como EGF o PDGF se une con el dominio extracelular de su RTK
- Proteínas tirosinas cinasas receptoras (RTK)
- Crecimiento, división, diferenciación, supervivencia, unión con la matriz extracelular y migración de las células.
- Proteínas tirosinas cinasas son enzimas que fosforilas residuos residuos de proteínas en sustratos proteínicos
Informationen
- Beschreibung
- Biología celular (Señalización celular) Mindmap am Señalización celular pt2, erstellt von Ana Melisa Molina Resendíz am 29/09/2017.
- Erstellt von
- Ana Melisa Molina Resendíz
- Aufrufe
- 19
- Bewertung