
Mind map
Reprodução dos Insetos
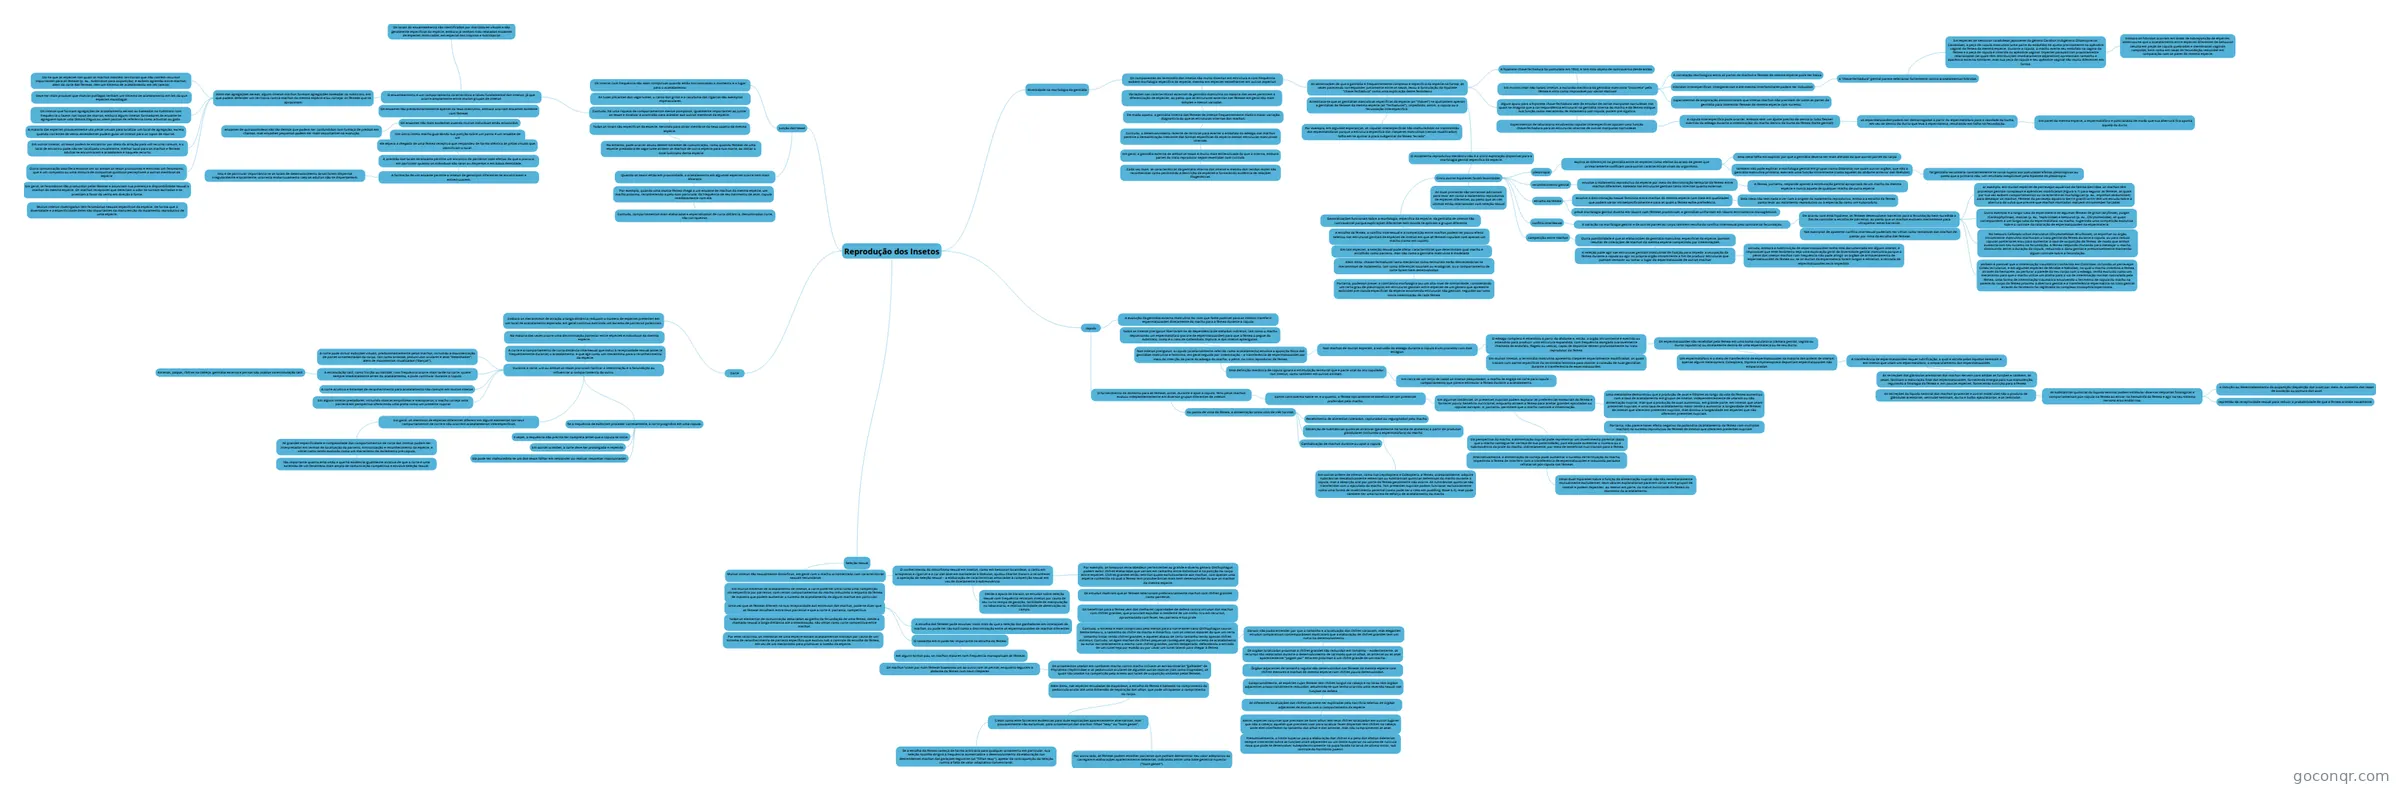
Mapa mental: Reprodução dos insetos
Map content
Reprodução dos Insetos
Junção dos sexos
- Os insetos com frequência são mais conspícuos quando estão sincronizando o momento e o lugar para o acasalamento.
- As luzes piscantes dos vaga-lumes, o canto dos grilos e a cacofonia das cigarras são exemplos espetaculares.
- Contudo, há uma riqueza de comportamentos menos pomposos, igualmente importantes ao juntar os sexos e sinalizar a prontidão para acasalar aos outros membros da espécie.
- Todos os sinais são específicos da espécie, servindo para atrair membros do sexo oposto da mesma espécie.
- No entanto, pode ocorrer abuso desses sistemas de comunicação, como quando fêmeas de uma espécie predadora de vaga-lume atraem os machos de outra espécie para sua morte, ao imitar o sinal luminoso dessa espécie
- O enxameamento é um comportamento característico e talvez fundamental dos insetos, já que ocorre amplamente entre muitos grupos de insetos
- Os locais do enxameamento são identificados por marcadores visuais e são geralmente específicos da espécie, embora já tenham sido relatados enxames de espécies misturadas, em especial nos trópicos e subtrópicos
- Os enxames são predominantemente apenas do sexo masculino, embora ocorram enxames somente com fêmeas.
- Os enxames são mais evidentes quando muitos indivíduos estão envolvidos,
- enxames de quironomídeos são tão densos que podem ser confundidos com fumaça de prédios em chamas, mas enxames pequenos podem ser mais importantes na evolução.
- Um único inseto macho guardando sua posição sobre um ponto é um enxame de um
- ele espera a chegada de uma fêmea receptiva que respondeu de forma idêntica às pistas visuais que identificam o local.
- A precisão dos locais de enxame permite um encontro de parceiros mais efetivo do que a procura, em particular quando os indivíduos são raros ou dispersos e em baixa densidade.
- A formação de um enxame permite a insetos de genótipos diferentes se encontrarem e entrecruzarem.
- Isso é de particular importância se os locais de desenvolvimento larval forem dispersos irregularmente e localmente; ocorreria endocruzamento caso os adultos não se dispersassem.
- A formação de um enxame permite a insetos de genótipos diferentes se encontrarem e entrecruzarem.
- A precisão dos locais de enxame permite um encontro de parceiros mais efetivo do que a procura, em particular quando os indivíduos são raros ou dispersos e em baixa densidade.
- ele espera a chegada de uma fêmea receptiva que respondeu de forma idêntica às pistas visuais que identificam o local.
- Os enxames são mais evidentes quando muitos indivíduos estão envolvidos,
- Além das agregações aéreas, alguns insetos machos formam agregações baseadas no substrato, em que podem defender um território contra machos da mesma espécie e/ou cortejar as fêmeas que se aproximam.
- Diz-se que as espécies nas quais os machos mantêm territórios que não contêm recursos importantes para as fêmeas (p. ex., substratos para oviposição), e exibem agressão entre machos, além da corte das fêmeas, têm um sistema de acasalamento em lek (arena).
- Deve ser mais provável que moscas polífagas tenham um sistema de acasalamento em lek do que espécies monófagas
- Os insetos que formam agregações de acasalamento aéreas ou baseadas no substrato com frequência o fazem nos topos de morros, embora alguns insetos formadores de enxame se agreguem sobre uma lâmina d’água ou usem pontos de referência como arbustos ou gado.
- A maioria das espécies provavelmente usa pistas visuais para localizar um local de agregação, exceto quando correntes de vento ascendentes podem guiar os insetos para os topos de morros.
- Em outros insetos, os sexos podem se encontrar por meio da atração para um recurso comum, e o local de encontro pode não ser localizado visualmente, melhor local para os machos e fêmeas adultas se encontrarem e acasalarem é naquele recurso.
- Outra comunicação odorífera envolve um ou ambos os sexos produzindo e emitindo um feromônio, que é um composto ou uma mistura de compostos químicos perceptíveis a outros membros da espécie
- Em geral, os feromônios são produzidos pelas fêmeas e anunciam sua presença e disponibilidade sexual a machos da mesma espécie. Os machos receptores que detectam o odor se tornam excitados e se orientam a favor do vento em direção à fonte.
- Muitos insetos investigados têm feromônios sexuais específicos da espécie, de forma que a diversidade e a especificidade deles são importantes na manutenção do isolamento reprodutivo de uma espécie.
- Em geral, os feromônios são produzidos pelas fêmeas e anunciam sua presença e disponibilidade sexual a machos da mesma espécie. Os machos receptores que detectam o odor se tornam excitados e se orientam a favor do vento em direção à fonte.
- Diz-se que as espécies nas quais os machos mantêm territórios que não contêm recursos importantes para as fêmeas (p. ex., substratos para oviposição), e exibem agressão entre machos, além da corte das fêmeas, têm um sistema de acasalamento em lek (arena).
- Todos os sinais são específicos da espécie, servindo para atrair membros do sexo oposto da mesma espécie.
- Contudo, há uma riqueza de comportamentos menos pomposos, igualmente importantes ao juntar os sexos e sinalizar a prontidão para acasalar aos outros membros da espécie.
- As luzes piscantes dos vaga-lumes, o canto dos grilos e a cacofonia das cigarras são exemplos espetaculares.
- Quando os sexos estão em proximidade, o acasalamento em algumas espécies ocorre sem mais alvoroço.
- Por exemplo, quando uma mosca-fêmea chega a um enxame de machos da mesma espécie, um macho próximo, reconhecendo-a pelo som particular da frequência de seu batimento de asas, copula imediatamente com ela.
- Contudo, comportamentos mais elaborados e especializados de curta distância, denominados corte, são corriqueiros.
- Por exemplo, quando uma mosca-fêmea chega a um enxame de machos da mesma espécie, um macho próximo, reconhecendo-a pelo som particular da frequência de seu batimento de asas, copula imediatamente com ela.
- Os insetos com frequência são mais conspícuos quando estão sincronizando o momento e o lugar para o acasalamento.
Corte
- Embora os mecanismos de atração a longa distância reduzam o número de espécies presentes em um local de acasalamento esperado, em geral continua existindo um excesso de parceiros potenciais.
- Na maioria das vezes ocorre uma discriminação posterior entre espécies e indivíduos da mesma espécie.
- A corte é o comportamento de curta distância intersexual que induz a receptividade sexual antes (e frequentemente durante) o acasalamento, e que age como um mecanismo para o reconhecimento da espécie.
- Durante a corte, um ou ambos os sexos procuram facilitar a inseminação e a fecundação ao influenciar o comportamento do outro.
- A corte pode incluir exibições visuais, predominantemente pelos machos, incluindo a movimentação de partes ornamentadas do corpo, tais como antenas, pedúnculos oculares e asas “desenhadas”, além de movimentos ritualizados (“danças”).
- A estimulação tátil, como fricção ou batidas, com frequência ocorre mais tarde na corte, quase sempre imediatamente antes do acasalamento, e pode continuar durante a cópula.
- Antenas, palpos, chifres na cabeça, genitália externa e pernas são usados na estimulação tátil.
- A corte acústica e sistemas de reconhecimento para acasalamento são comuns em muitos insetos
- Em alguns insetos predadores, incluindo moscas empidídeas e mecópteros, o macho corteja uma parceira em perspectiva oferecendo uma presa como um presente nupcial
- Se a sequência de exibições proceder corretamente, a corte progridirá em uma cópula.
- s vezes, a sequência não precisa ser completa antes que a cópula se inicie.
- Em outras ocasiões, a corte deve ser prolongada e repetida.
- Ela pode ser malsucedida se um dos sexos falhar em responder ou realizar respostas inapropriadas.
- Em geral, os membros de espécies diferentes diferem em alguns elementos nos seus comportamentos de corte e não ocorrem acasalamentos interespecíficos.
- As grandes especificidade e complexidade dos comportamentos de corte dos insetos podem ser interpretadas em termos de localização do parceiro, sincronização e reconhecimento da espécie, e vistas como tendo evoluído como um mecanismo de isolamento pré-cópula.
- Tão importante quanto essa visão é que há evidência igualmente atrativa de que a corte é uma extensão de um fenômeno mais amplo de comunicação competitiva e envolve seleção sexual.
- As grandes especificidade e complexidade dos comportamentos de corte dos insetos podem ser interpretadas em termos de localização do parceiro, sincronização e reconhecimento da espécie, e vistas como tendo evoluído como um mecanismo de isolamento pré-cópula.
- Durante a corte, um ou ambos os sexos procuram facilitar a inseminação e a fecundação ao influenciar o comportamento do outro.
- A corte é o comportamento de curta distância intersexual que induz a receptividade sexual antes (e frequentemente durante) o acasalamento, e que age como um mecanismo para o reconhecimento da espécie.
- Na maioria das vezes ocorre uma discriminação posterior entre espécies e indivíduos da mesma espécie.
- Embora os mecanismos de atração a longa distância reduzam o número de espécies presentes em um local de acasalamento esperado, em geral continua existindo um excesso de parceiros potenciais.
Seleção sexual
- Muitos insetos são sexualmente dimórficos, em geral com o macho ornamentado com características sexuais secundárias
- Em muitos sistemas de acasalamento de insetos, a corte pode ser vista como uma competição intraespecífica por parceiros, com certos comportamentos do macho induzindo a resposta da fêmea de maneira que podem aumentar o sucesso de acasalamento de alguns machos em particular.
- Uma vez que as fêmeas diferem na sua receptividade aos estímulos dos machos, pode-se dizer que as fêmeas escolhem entre seus parceiros e que a corte é, portanto, competitiva.
- A escolha das fêmeas pode envolver nada mais do que a seleção dos ganhadores em interações de machos, ou pode ser tão sutil como a discriminação entre os espermatozoides de machos diferentes
- Todos os elementos de comunicação associados ao ganho da fecundação de uma fêmea, desde o chamado sexual a longa distância até a inseminação, são vistos como corte competitiva entre machos.
- Por esse raciocínio, os membros de uma espécie evitam acasalamentos híbridos por causa de um sistema de reconhecimento de parceiro específico que evoluiu sob o controle da escolha da fêmea, em vez de um mecanismo para promover a coesão da espécie.
- O tamanho em si pode ser importante na escolha da fêmea:
- em alguns bichos-pau, os machos maiores com frequência monopolizam as fêmeas.
- Os machos lutam por suas fêmeas boxeando um ao outro com as pernas, enquanto seguram o abdome da fêmea com seus clásperes
- Os ornamentos usados em combates macho contra macho incluem as extraordinárias “galhadas” de Phytalmia (Tephritidae) e os pedúnculos oculares de algumas outras moscas (tais como Diopsidae), os quais são usados na competição pelo acesso aos locais de oviposição visitados pelas fêmeas.
- Além disso, nas espécies estudadas de diopsídeos, a escolha da fêmea é baseada no comprimento do pedúnculo ocular até uma dimensão de separação dos olhos, que pode ultrapassar o comprimento do corpo.
- Casos como esse fornecem evidências para duas explicações aparentemente alternativas, mas provavelmente não exclusivas, para ornamentos dos machos: filhos “sexy” ou “bons genes”.
- Se a escolha da fêmea começa de forma arbitrária para qualquer ornamento em particular, sua seleção sozinha dirigirá a frequência aumentada e o desenvolvimento da elaboração nos descendentes machos das gerações seguintes (os “filhos sexy”), apesar da contraposição da seleção contra a falta de valor adaptativo convencional.
- Por outro lado, as fêmeas podem escolher parceiros que possam demonstrar seu valor adaptativo ao carregarem elaborações aparentemente deletérias, indicando assim uma base genética superior (“bons genes”).
- Casos como esse fornecem evidências para duas explicações aparentemente alternativas, mas provavelmente não exclusivas, para ornamentos dos machos: filhos “sexy” ou “bons genes”.
- Além disso, nas espécies estudadas de diopsídeos, a escolha da fêmea é baseada no comprimento do pedúnculo ocular até uma dimensão de separação dos olhos, que pode ultrapassar o comprimento do corpo.
- Os ornamentos usados em combates macho contra macho incluem as extraordinárias “galhadas” de Phytalmia (Tephritidae) e os pedúnculos oculares de algumas outras moscas (tais como Diopsidae), os quais são usados na competição pelo acesso aos locais de oviposição visitados pelas fêmeas.
- Os machos lutam por suas fêmeas boxeando um ao outro com as pernas, enquanto seguram o abdome da fêmea com seus clásperes
- em alguns bichos-pau, os machos maiores com frequência monopolizam as fêmeas.
- Uma vez que as fêmeas diferem na sua receptividade aos estímulos dos machos, pode-se dizer que as fêmeas escolhem entre seus parceiros e que a corte é, portanto, competitiva.
- O conhecimento do dimorfismo sexual em insetos, como em besouros lucanídeos, o canto em ortópteros e cigarras e a cor das asas em borboletas e libélulas, ajudou Charles Darwin a reconhecer a operação da seleção sexual – a elaboração de características associadas à competição sexual em vez de diretamente à sobrevivência.
- Desde a época de Darwin, os estudos sobre seleção sexual com frequência retratam insetos por causa de seu curto tempo de geração, facilidade de manipulação no laboratório, e relativa facilidade de observação no campo.
- Por exemplo, os besouros escarabeídeos pertencentes ao grande e diverso gênero Onthophagus podem exibir chifres elaborados que variam em tamanho entre indivíduos e na posição no corpo entre espécies. Chifres grandes estão restritos quase exclusivamente aos machos, com apenas uma espécie conhecida na qual a fêmea tem protuberâncias mais bem desenvolvidas do que os machos da mesma espécie.
- Os estudos mostram que as fêmeas selecionam preferencialmente machos com chifres grandes como parceiros.
- Os benefícios para a fêmea vêm das melhores capacidades de defesa contra intrusos dos machos com chifres grandes, que procuram expulsar o residente de um ninho rico em recursos, aprovisionado com fezes, seu parceiro e sua prole
- Contudo, o sistema é mais complicado pelo menos para o norte-americano Onthophagus taurus. Nesse besouro, o tamanho do chifre do macho é dimórfico, com os insetos maiores do que um certo tamanho limiar tendo chifres grandes, e aqueles abaixo de certo tamanho tendo apenas chifres mínimos. Contudo, os ágeis machos de chifres pequenos conseguem algum sucesso de acasalamento ao evitar sorrateiramente o macho com chifres grandes, porém desajeitado, defendendo a entrada de um túnel seja por evasão ou por cavar um túnel lateral para chegar à fêmea.
- Darwin não podia entender por que o tamanho e a localização dos chifres variavam, mas elegantes estudos comparativos contemporâneos mostraram que a elaboração de chifres grandes tem um custo no desenvolvimento.
- Os órgãos localizados próximos a chifres grandes são reduzidos em tamanho – evidentemente, os recursos são realocados durante o desenvolvimento de tal modo que os olhos, as antenas ou as asas aparentemente “pagam por” estarem próximos a um chifre grande de um macho.
- . Órgãos adjacentes de tamanho regular são desenvolvidos nas fêmeas da mesma espécie com chifres menores e machos da mesma espécie com chifres pouco desenvolvidos.
- Excepcionalmente, as espécies cujas fêmeas têm chifres longos na cabeça e no tórax têm órgãos adjacentes proporcionalmente reduzidos, assumindo-se que tenha ocorrido uma reversão sexual nas funções de defesa
- As diferentes localizações dos chifres parecem ser explicadas pelo sacrifício seletivo de órgãos adjacentes de acordo com o comportamento da espécie.
- Assim, espécies noturnas que precisam de bons olhos têm seus chifres localizados em outros lugares que não a cabeça; aquelas que precisam voar para localizar fezes dispersas têm chifres na cabeça, onde eles interferem no tamanho dos olhos e das antenas, mas não comprometem as asas.
- Presumivelmente, o limite superior para a elaboração dos chifres é o peso dos efeitos deletérios sempre crescentes sobre as funções vitais adjacentes ou um limite superior no volume de cutícula nova que pode se desenvolver subepidermicamente na pupa farada na larva de último instar, sob controle do hormônio juvenil.
- Assim, espécies noturnas que precisam de bons olhos têm seus chifres localizados em outros lugares que não a cabeça; aquelas que precisam voar para localizar fezes dispersas têm chifres na cabeça, onde eles interferem no tamanho dos olhos e das antenas, mas não comprometem as asas.
- As diferentes localizações dos chifres parecem ser explicadas pelo sacrifício seletivo de órgãos adjacentes de acordo com o comportamento da espécie.
- Excepcionalmente, as espécies cujas fêmeas têm chifres longos na cabeça e no tórax têm órgãos adjacentes proporcionalmente reduzidos, assumindo-se que tenha ocorrido uma reversão sexual nas funções de defesa
- . Órgãos adjacentes de tamanho regular são desenvolvidos nas fêmeas da mesma espécie com chifres menores e machos da mesma espécie com chifres pouco desenvolvidos.
- Os órgãos localizados próximos a chifres grandes são reduzidos em tamanho – evidentemente, os recursos são realocados durante o desenvolvimento de tal modo que os olhos, as antenas ou as asas aparentemente “pagam por” estarem próximos a um chifre grande de um macho.
- Darwin não podia entender por que o tamanho e a localização dos chifres variavam, mas elegantes estudos comparativos contemporâneos mostraram que a elaboração de chifres grandes tem um custo no desenvolvimento.
- Contudo, o sistema é mais complicado pelo menos para o norte-americano Onthophagus taurus. Nesse besouro, o tamanho do chifre do macho é dimórfico, com os insetos maiores do que um certo tamanho limiar tendo chifres grandes, e aqueles abaixo de certo tamanho tendo apenas chifres mínimos. Contudo, os ágeis machos de chifres pequenos conseguem algum sucesso de acasalamento ao evitar sorrateiramente o macho com chifres grandes, porém desajeitado, defendendo a entrada de um túnel seja por evasão ou por cavar um túnel lateral para chegar à fêmea.
- Os benefícios para a fêmea vêm das melhores capacidades de defesa contra intrusos dos machos com chifres grandes, que procuram expulsar o residente de um ninho rico em recursos, aprovisionado com fezes, seu parceiro e sua prole
- Os estudos mostram que as fêmeas selecionam preferencialmente machos com chifres grandes como parceiros.
- Em muitos sistemas de acasalamento de insetos, a corte pode ser vista como uma competição intraespecífica por parceiros, com certos comportamentos do macho induzindo a resposta da fêmea de maneira que podem aumentar o sucesso de acasalamento de alguns machos em particular.
- Muitos insetos são sexualmente dimórficos, em geral com o macho ornamentado com características sexuais secundárias
cópula
- A evolução da genitália externa masculina fez com que fosse possível para os insetos transferir espermatozoides diretamente do macho para a fêmea durante a cópula.
- Todos os insetos pterigotos libertaram-se da dependência de métodos indiretos, tais como o macho depositando um espermatóforo (pacote de espermatozoides) para que a fêmea o pegue do substrato, como é o caso de Collembola, Diplura, e dos insetos apterigotos.
- Nos insetos pterigotos, a cópula (ocasionalmente referida como acasalamento) envolve a aposição física das genitálias masculina e feminina, em geral seguida por inseminação – a transferência de espermatozoides por meio da inserção de parte do edeago do macho, o pênis, no trato reprodutor da fêmea.
- Nos machos de muitas espécies, a extrusão do edeago durante a cópula é um processo com dois estágios.
- O edeago completo é estendido a partir do abdome e, então, o órgão intromitente é evertido ou estendido para produzir uma estrutura expandida, com frequência alongada (variavelmente chamada de endofalo, flagelo ou vesica), capaz de depositar sêmen profundamente no trato reprodutor da fêmea
- Em muitos insetos, a terminália masculina apresenta clásperes especialmente modificados, os quais travam com partes específicas da terminália feminina para manter a conexão de suas genitálias durante a transferência de espermatozoides.
- Os espermatozoides são recebidos pela fêmea em uma bolsa copulatória (câmara genital, vagina ou bursa copulatrix) ou diretamente dentro de uma espermateca ou de seu ducto.
- Um espermatóforo é o meio de transferência de espermatozoides na maioria das ordens de insetos; apenas alguns Heteroptera, Coleoptera, Diptera e Hymenoptera depositam espermatozoides não empacotados.
- A transferência de espermatozoides requer lubrificação, a qual é obtida pelos líquidos seminais e, em insetos que usam um espermatóforo, o empacotamento dos espermatozoides.
- As secreções das glândulas acessórias dos machos servem para ambas as funções e também, às vezes, facilitam a maturação final dos espermatozoides, fornecendo energia para sua manutenção, regulando a fisiologia da fêmea e, em poucas espécies, fornecendo nutrição para a fêmea
- As secreções do líquido seminal dos machos (proteínas e outras moléculas) são o produto de glândulas acessórias, vesículas seminais, ducto e bulbo ejaculatórios, e os testículos.
- As substâncias químicas do líquido seminal podem estimular diversas respostas fisiológicas e comportamentais pós-cópula na fêmea ao entrar na hemolinfa da fêmea e agir no seu sistema nervoso e/ou endócrino.
- a indução ou desencadeamento da oviposição (deposição dos ovos) por meio do aumento das taxas de ovulação ou postura dos ovos
- repressão da receptividade sexual para reduzir a probabilidade de que a fêmea acasale novamente.
- As substâncias químicas do líquido seminal podem estimular diversas respostas fisiológicas e comportamentais pós-cópula na fêmea ao entrar na hemolinfa da fêmea e agir no seu sistema nervoso e/ou endócrino.
- As secreções do líquido seminal dos machos (proteínas e outras moléculas) são o produto de glândulas acessórias, vesículas seminais, ducto e bulbo ejaculatórios, e os testículos.
- As secreções das glândulas acessórias dos machos servem para ambas as funções e também, às vezes, facilitam a maturação final dos espermatozoides, fornecendo energia para sua manutenção, regulando a fisiologia da fêmea e, em poucas espécies, fornecendo nutrição para a fêmea
- A transferência de espermatozoides requer lubrificação, a qual é obtida pelos líquidos seminais e, em insetos que usam um espermatóforo, o empacotamento dos espermatozoides.
- Um espermatóforo é o meio de transferência de espermatozoides na maioria das ordens de insetos; apenas alguns Heteroptera, Coleoptera, Diptera e Hymenoptera depositam espermatozoides não empacotados.
- O edeago completo é estendido a partir do abdome e, então, o órgão intromitente é evertido ou estendido para produzir uma estrutura expandida, com frequência alongada (variavelmente chamada de endofalo, flagelo ou vesica), capaz de depositar sêmen profundamente no trato reprodutor da fêmea
- Essa definição mecânica de cópula ignora a estimulação sensorial que é parte vital do ato copulador nos insetos, como também em outros animais.
- Em cerca de um terço de todos os insetos pesquisados, o macho se engaja na corte para cópula – comportamento que parece estimular a fêmea durante o acasalamento.
- Nos machos de muitas espécies, a extrusão do edeago durante a cópula é um processo com dois estágios.
- Nos insetos pterigotos, a cópula (ocasionalmente referida como acasalamento) envolve a aposição física das genitálias masculina e feminina, em geral seguida por inseminação – a transferência de espermatozoides por meio da inserção de parte do edeago do macho, o pênis, no trato reprodutor da fêmea.
- Todos os insetos pterigotos libertaram-se da dependência de métodos indiretos, tais como o macho depositando um espermatóforo (pacote de espermatozoides) para que a fêmea o pegue do substrato, como é o caso de Collembola, Diplura, e dos insetos apterigotos.
- O fornecimento de alimento para as fêmeas, antes, durante e após a cópula, feito pelos machos evoluiu independentemente em diversos grupos diferentes de insetos.
- Do ponto de vista da fêmea, a alimentação toma uma de três formas:
- Recebimento de alimentos coletados, capturados ou regurgitados pelo macho
- Obtenção de substâncias químicas atrativas (geralmente na forma de alimento) a partir de produtos glandulares (incluindo o espermatóforo) do macho
- Em outras ordens de insetos, como nos Lepidoptera e Coleoptera, a fêmea, ocasionalmente, adquire substâncias metabolicamente essenciais ou substâncias químicas defensivas do macho durante a cópula, mas a absorção oral por parte da fêmea geralmente não ocorre. As substâncias químicas são transferidas com o ejaculado do macho. Tais presentes nupciais podem funcionar exclusivamente como uma forma de investimento parental (como pode ser o caso em puddling; Boxe 5.4), mas pode também ser uma forma de esforço de acasalamento do macho
- Canibalização de machos durante ou após a cópula
- Existe controvérsia sobre se, e o quanto, a fêmea tipicamente se beneficia de tais presentes proferidos pelo macho.
- Em algumas instâncias, os presentes nupciais podem explorar as preferências sensoriais da fêmea e fornecer pouco benefício nutricional, enquanto atraem a fêmea para aceitar grandes ejaculados ou cópulas extrapar, e, portanto, permitem que o macho controle a inseminação.
- Uma metanálise demonstrou que a produção de ovos e filhotes ao longo da vida da fêmea aumentou com a taxa de acasalamento em grupos de insetos, independentemente de usarem ou não alimentação nupcial, mas que a produção de ovos aumentou, em grande parte, em insetos que usam presentes nupciais, e uma taxa de acasalamento maior tende a aumentar a longevidade de fêmeas de insetos que oferecem presentes nupciais, mas diminui a longevidade em espécies que não oferecem presentes nupciais.
- Portanto, não parece haver efeito negativo da poliandria (acasalamento da fêmea com múltiplos machos) no sucesso reprodutivo de fêmeas de insetos que oferecem presentes nupciais.
- Da perspectiva do macho, a alimentação nupcial pode representar um investimento parental (dado que o macho consegue ter certeza de sua paternidade), pois ela pode aumentar o número ou a sobrevivência da prole do macho, indiretamente, por meio de benefícios nutricionais para a fêmea.
- Alternativamente, a alimentação de cortejo pode aumentar o sucesso de fertilização do macho, impedindo a fêmea de interferir com a transferência de espermatozoides e induzindo períodos refratários pós-cópula nas fêmeas.
- Essas duas hipóteses sobre a função da alimentação nupcial não são necessariamente mutualmente excludentes; seus valores explanatórios parecem variar entre grupos de insetos e podem depender, ao menos em parte, do status nutricional da fêmea no momento do acasalamento.
- Alternativamente, a alimentação de cortejo pode aumentar o sucesso de fertilização do macho, impedindo a fêmea de interferir com a transferência de espermatozoides e induzindo períodos refratários pós-cópula nas fêmeas.
- Uma metanálise demonstrou que a produção de ovos e filhotes ao longo da vida da fêmea aumentou com a taxa de acasalamento em grupos de insetos, independentemente de usarem ou não alimentação nupcial, mas que a produção de ovos aumentou, em grande parte, em insetos que usam presentes nupciais, e uma taxa de acasalamento maior tende a aumentar a longevidade de fêmeas de insetos que oferecem presentes nupciais, mas diminui a longevidade em espécies que não oferecem presentes nupciais.
- Em algumas instâncias, os presentes nupciais podem explorar as preferências sensoriais da fêmea e fornecer pouco benefício nutricional, enquanto atraem a fêmea para aceitar grandes ejaculados ou cópulas extrapar, e, portanto, permitem que o macho controle a inseminação.
- Do ponto de vista da fêmea, a alimentação toma uma de três formas:
- A evolução da genitália externa masculina fez com que fosse possível para os insetos transferir espermatozoides diretamente do macho para a fêmea durante a cópula.
diversidade na morfologia da genitália
- Os componentes da terminália dos insetos são muito diversos em estrutura e com frequência exibem morfologia específica da espécie, mesmo em espécies semelhantes em outros aspectos.
- Variações nas características externas da genitália masculina na maioria das vezes permitem a diferenciação de espécies, ao passo que as estruturas externas nas fêmeas em geral são mais simples e menos variadas.
- De modo oposto, a genitália interna das fêmeas de insetos frequentemente mostra maior variação diagnóstica do que as estruturas internas dos machos.
- Contudo, o desenvolvimento recente de técnicas para everter o endofalo do edeago dos machos permite a demonstração crescente das formas específicas da espécie dessas estruturas masculinas internas.
- Em geral, a genitália externa de ambos os sexos é muito mais esclerotizada do que a interna, embora partes do trato reprodutor sejam revestidas com cutícula.
- . Cada vez mais, as características da genitália interna dos insetos e mesmo dos tecidos moles são reconhecidas como permitindo a descrição de espécies e fornecendo evidência de relações filogenéticas.
- Em geral, a genitália externa de ambos os sexos é muito mais esclerotizada do que a interna, embora partes do trato reprodutor sejam revestidas com cutícula.
- Contudo, o desenvolvimento recente de técnicas para everter o endofalo do edeago dos machos permite a demonstração crescente das formas específicas da espécie dessas estruturas masculinas internas.
- De modo oposto, a genitália interna das fêmeas de insetos frequentemente mostra maior variação diagnóstica do que as estruturas internas dos machos.
- As observações de que a genitália é frequentemente complexa e específica da espécie na forma, às vezes parecendo corresponder justamente entre os sexos, levou à formulação da hipótese “chave-fechadura” como uma explicação desse fenômeno
- Acreditava-se que as genitálias masculinas específicas da espécie (as “chaves”) se ajustassem apenas a genitálias de fêmeas da mesma espécie (as “fechaduras”), impedindo, assim, a cópula ou a fecundação interespecífica.
- Por exemplo, em algumas esperanças, as cópulas interespecíficas são malsucedidas na transmissão dos espermatóforos porque a estrutura específica dos clásperes masculinos (cercos modificados) falha em se ajustar à placa subgenital da fêmea “errada”.
- O isolamento reprodutivo mecânico não é a única explicação disponível para a morfologia genital específica da espécie.
- Cinco outras hipóteses foram levantadas:
- pleiotropia
- explica as diferenças na genitália entre as espécies como efeitos ao acaso de genes que primariamente codificam para outras características vitais do organismo.
- Essa ideia falha em explicar por que a genitália deveria ser mais afetada do que outras partes do corpo
- também não pode explicar a morfologia genital em grupos (como Odonata) nos quais outros órgãos, que não a genitália masculina primária, exercem uma função intromitente (como aqueles do abdome anterior das libélulas)
- Tal genitália secundária constantemente se torna sujeita aos postulados efeitos pleiotrópicos ao passo que a primária não, um resultado inexplicável pela hipótese de pleiotropia.
- explica as diferenças na genitália entre as espécies como efeitos ao acaso de genes que primariamente codificam para outras características vitais do organismo.
- reconhecimento genital
- envolve o isolamento reprodutivo da espécie por meio da discriminação sensorial da fêmea entre machos diferentes, baseada nas estruturas genitais tanto internas quanto externas.
- A fêmea, portanto, responde apenas à estimulação genital apropriada de um macho da mesma espécie e nunca àquela de qualquer macho de outra espécie
- envolve o isolamento reprodutivo da espécie por meio da discriminação sensorial da fêmea entre machos diferentes, baseada nas estruturas genitais tanto internas quanto externas.
- escolha da fêmea
- envolve a discriminação sexual feminina entre machos da mesma espécie com base em qualidades que podem variar intraespecificamente e para as quais a fêmea exibe preferência.
- Essa ideia não tem nada a ver com a origem do isolamento reprodutivo, embora a escolha da fêmea possa levar ao isolamento reprodutivo ou à especiação como um subproduto.
- prevê morfologia genital diversa em táxons com fêmeas promíscuas, e genitálias uniformes em táxons estritamente monogâmicos.
- envolve a discriminação sexual feminina entre machos da mesma espécie com base em qualidades que podem variar intraespecificamente e para as quais a fêmea exibe preferência.
- conflito intersexual
- A variação na morfologia genital e de outras partes do corpo também resulta do conflito intersexual pelo controle da fecundação.
- De acordo com essa hipótese, as fêmeas desenvolvem barreiras para a fecundação bem-sucedida a fim de controlar a escolha de parceiros, ao passo que os machos evoluem mecanismos para ultrapassar essas barreiras.
- or exemplo, em muitas espécies de percevejos aquáticos da família Gerridae, os machos têm processos genitais complexos e apêndices modificados (Figura 5.7) para segurar as fêmeas, as quais por sua vez exibem comportamentos ou características morfológicas (p. ex., espinhos abdominais) para desalojar os machos. Fêmeas do percevejo aquático Gerris gracilicornis têm um escudo sobre a abertura da vulva que previne que machos montados realizem intromissões forçadas.
- Outro exemplo é o longo tubo da espermateca de algumas fêmeas de grilos (Gryllinae), pulgas (Ceratophyllinae), moscas (p. ex., Tephritidae) e besouros (p. ex., Chrysomelidae), os quais correspondem a um longo tubo do espermatóforo no macho, sugerindo uma competição evolutiva sobre o controle da colocação de espermatozoides na espermateca.
- No besouro Callosobruchus maculatus (Chrysomelidae: Bruchinae), os espinhos no órgão intromitente masculino machucam o trato genital da fêmea durante a cópula, ou para reduzir cópulas posteriores e/ou para aumentar a taxa de oviposição da fêmea, de modo que ambos aumentariam seu sucesso na fecundação. A fêmea responde chutando para desalojar o macho, diminuindo assim a duração da cópula, reduzindo o dano genital e presumivelmente mantendo algum controle sobre a fecundação.
- ambém é possível que a inseminação traumática (conhecida em Cimicidae, incluindo os percevejos Cimex lectularius, e em algumas espécies de Miridae e Nabidae), na qual o macho insemina a fêmea, através da hemocele, ao perfurar a parede do seu corpo com o edeago, tenha evoluído como um mecanismo para que o macho utilize um atalho para a via de inseminação normal controlada pela fêmea. Uma forma de inseminação traumática envolvendo o ferimento de cópula do macho na parede do corpo da fêmea próximo à abertura genital e a transferência espermática no trato genital através do ferimento foi registrada no complexo Drosophila bipectinata.
- Tais exemplos de aparente conflito intersexual poderiam ser vistos como tentativas dos machos de passar por cima da escolha das fêmeas.
- De acordo com essa hipótese, as fêmeas desenvolvem barreiras para a fecundação bem-sucedida a fim de controlar a escolha de parceiros, ao passo que os machos evoluem mecanismos para ultrapassar essas barreiras.
- A variação na morfologia genital e de outras partes do corpo também resulta do conflito intersexual pelo controle da fecundação.
- competição entre machos
- Outra possibilidade é que as elaborações da genitália masculina, específicas da espécie, possam resultar de interações de machos da mesma espécie competindo por inseminações.
- A seleção pode agir nas estruturas genitais masculinas de fixação para impedir a usurpação da fêmea durante a cópula ou agir no próprio órgão intromitente a fim de produzir estruturas que possam remover ou tomar o lugar do espermatozoide de outros machos
- ontudo, embora a substituição de espermatozoides tenha sido documentada em alguns insetos, é improvável que esse fenômeno seja uma explicação geral da diversidade genital masculina porque o pênis dos insetos machos com frequência não pode atingir os órgãos de armazenamento de espermatozoides da fêmea ou, se os ductos da espermateca forem longos e estreitos, a retirada de espermatozoides seria impedida.
- A seleção pode agir nas estruturas genitais masculinas de fixação para impedir a usurpação da fêmea durante a cópula ou agir no próprio órgão intromitente a fim de produzir estruturas que possam remover ou tomar o lugar do espermatozoide de outros machos
- Outra possibilidade é que as elaborações da genitália masculina, específicas da espécie, possam resultar de interações de machos da mesma espécie competindo por inseminações.
- As duas primeiras são tentativas adicionais para levar em conta o isolamento reprodutivo de espécies diferentes, ao passo que as três últimas estão relacionadas com seleção sexual
- Generalizações funcionais sobre a morfologia, específica da espécie, da genitália de insetos são controversas porque explicações diferentes sem dúvida se aplicam a grupos diferente
- A escolha da fêmea, o conflito intersexual e a competição entre machos podem ter pouco efeito seletivo nas estruturas genitais de espécies de insetos em que as fêmeas copulam com apenas um macho (como em cupins).
- Em tais espécies, a seleção sexual pode afetar características que determinam qual macho é escolhido como parceiro, mas não como a genitália masculina é modelada
- Além disso, chaves-fechaduras tanto mecânicas como sensoriais serão desnecessárias se mecanismos de isolamento, tais como diferenças sazonais ou ecológicas, ou o comportamento de corte forem bem desenvolvidos.
- Portanto, podemos prever a constância morfológica (ou um alto nível de similaridade, considerando um certo grau de pleiotropia) em estruturas genitais entre espécies de um gênero que apresente exibições pré-cópula específicas da espécie envolvendo estruturas não genitais, seguidas por uma única inseminação de cada fêmea.
- Além disso, chaves-fechaduras tanto mecânicas como sensoriais serão desnecessárias se mecanismos de isolamento, tais como diferenças sazonais ou ecológicas, ou o comportamento de corte forem bem desenvolvidos.
- Em tais espécies, a seleção sexual pode afetar características que determinam qual macho é escolhido como parceiro, mas não como a genitália masculina é modelada
- A escolha da fêmea, o conflito intersexual e a competição entre machos podem ter pouco efeito seletivo nas estruturas genitais de espécies de insetos em que as fêmeas copulam com apenas um macho (como em cupins).
- pleiotropia
- Cinco outras hipóteses foram levantadas:
- A hipótese chave-fechadura foi postulada em 1844, e tem sido objeto de controvérsia desde então.
- Em muitos (mas não todos) insetos, a exclusão mecânica da genitália masculina “incorreta” pela fêmea é vista como improvável por vários motivos:
- A correlação morfológica entre as partes de machos e fêmeas da mesma espécie pode ser baixa
- Híbridos interespecíficos, intergenéricos e até mesmo interfamiliares podem ser induzidos
- a “chave-fechadura” genital parece selecionar fortemente contra acasalamentos híbridos.
- Em espécies de besouros carabídeos japoneses do gênero Carabus (subgênero Ohomopterus: Carabidae), a peça de cópula masculina (uma parte do endofalo) se ajusta precisamente no apêndice vaginal da fêmea da mesma espécie. Durante a cópula, o macho everte seu endofalo na vagina da fêmea e a peça de cópula é inserida no apêndice vaginal. Espécies parapátricas proximamente relacionadas (as quais têm distribuições imediatamente adjacentes) apresentam tamanho e aparência externa similares, mas sua peça de cópula e seu apêndice vaginal são muito diferentes em forma.
- Embora os híbridos ocorram em áreas de sobreposição de espécies, observou-se que o acasalamento entre espécies diferentes de besouros resulta em peças de cópula quebradas e membranas vaginais rompidas, bem como em taxas de fecundação reduzidas em comparação com os pares da mesma espécie.
- Em espécies de besouros carabídeos japoneses do gênero Carabus (subgênero Ohomopterus: Carabidae), a peça de cópula masculina (uma parte do endofalo) se ajusta precisamente no apêndice vaginal da fêmea da mesma espécie. Durante a cópula, o macho everte seu endofalo na vagina da fêmea e a peça de cópula é inserida no apêndice vaginal. Espécies parapátricas proximamente relacionadas (as quais têm distribuições imediatamente adjacentes) apresentam tamanho e aparência externa similares, mas sua peça de cópula e seu apêndice vaginal são muito diferentes em forma.
- a “chave-fechadura” genital parece selecionar fortemente contra acasalamentos híbridos.
- Experimentos de amputação demonstraram que insetos machos não precisam de todas as partes da genitália para inseminar fêmeas da mesma espécie com sucesso.
- Em muitos (mas não todos) insetos, a exclusão mecânica da genitália masculina “incorreta” pela fêmea é vista como improvável por vários motivos:
- Algum apoio para a hipótese chave-fechadura vem de estudos de certas mariposas noctuídeas nas quais se imagina que a correspondência estrutural na genitália interna do macho e da fêmea indique sua função como mecanismo de isolamento pós-cópula, porém pré-zigótico.
- Experimentos de laboratório envolvendo cópulas interespecíficas apoiam uma função chave-fechadura para as estruturas internas de outras mariposas noctuídeas.
- A cópula interespecífica pode ocorrer, embora sem um ajuste preciso da vesica (o tubo flexível evertido do edeago durante a inseminação) do macho dentro da bursa da fêmea (bolsa genital);
- os espermatozoides podem ser descarregados a partir do espermatóforo para a cavidade da bursa, em vez de dentro do ducto que leva à espermateca, resultando em falha na fecundação.
- . Em pares da mesma espécie, o espermatóforo é posicionado de modo que sua abertura fica oposta àquela do ducto
- os espermatozoides podem ser descarregados a partir do espermatóforo para a cavidade da bursa, em vez de dentro do ducto que leva à espermateca, resultando em falha na fecundação.
- A cópula interespecífica pode ocorrer, embora sem um ajuste preciso da vesica (o tubo flexível evertido do edeago durante a inseminação) do macho dentro da bursa da fêmea (bolsa genital);
- Experimentos de laboratório envolvendo cópulas interespecíficas apoiam uma função chave-fechadura para as estruturas internas de outras mariposas noctuídeas.
- Acreditava-se que as genitálias masculinas específicas da espécie (as “chaves”) se ajustassem apenas a genitálias de fêmeas da mesma espécie (as “fechaduras”), impedindo, assim, a cópula ou a fecundação interespecífica.
- Variações nas características externas da genitália masculina na maioria das vezes permitem a diferenciação de espécies, ao passo que as estruturas externas nas fêmeas em geral são mais simples e menos variadas.
- Os componentes da terminália dos insetos são muito diversos em estrutura e com frequência exibem morfologia específica da espécie, mesmo em espécies semelhantes em outros aspectos.
Information
- Description
- Entomologia Geral (Insetos: Fundamentos da entomologia- Gullan & Craston) Mind Map on Reprodução dos Insetos, created by Mariana Macedo on 22/08/2019.
- Created by
- Mariana Macedo
- Views
- 2
- Rating
More on Reprodução e desenvolvimento dos insetos