
Mapa mental
PROTEÍNAS
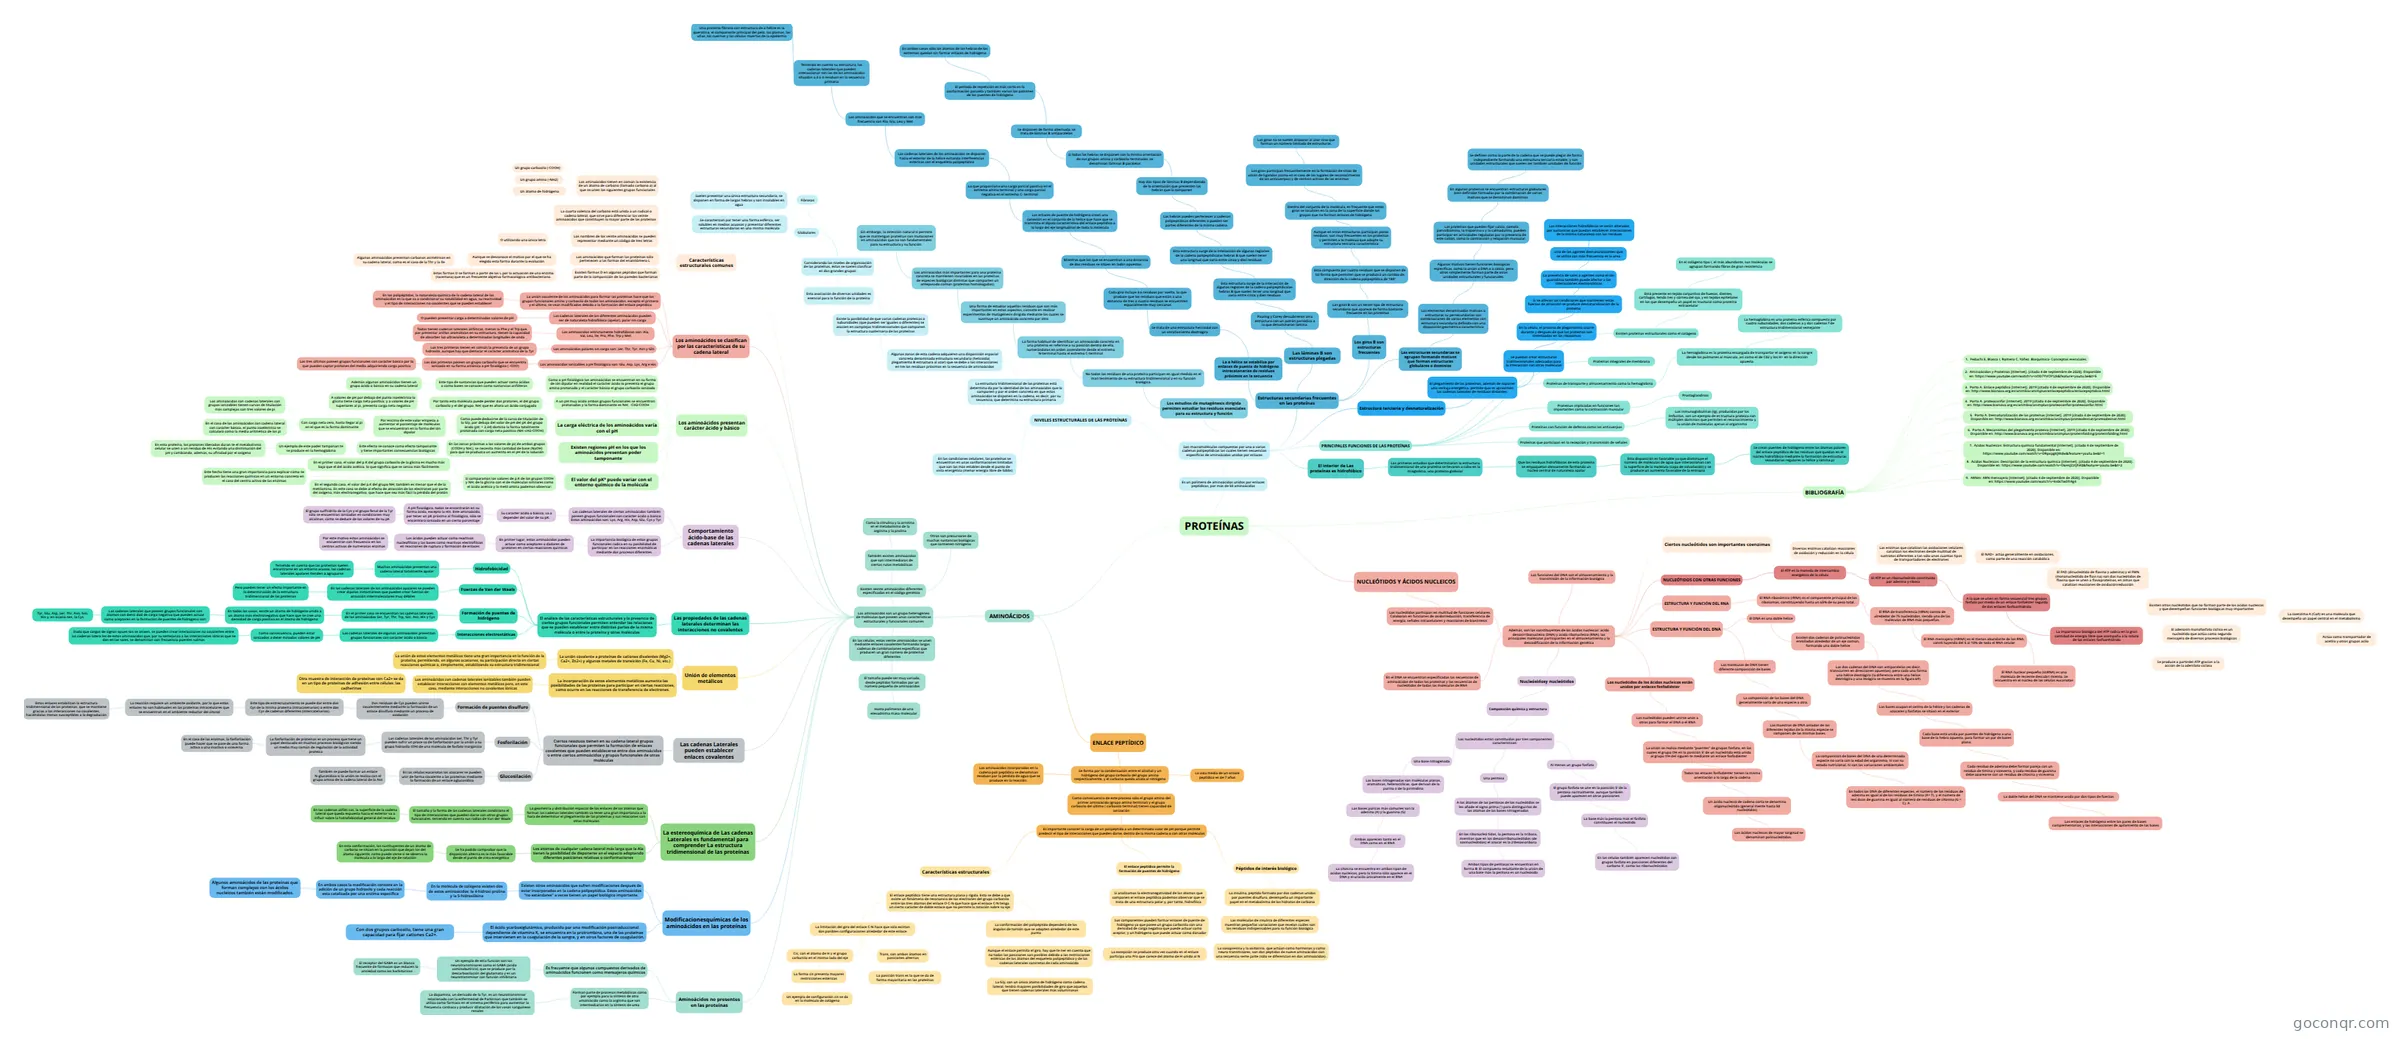
Mapa mental: proteínas
Conteúdo do mapa
PROTEÍNAS
AMINOÁCIDOS
- Los aminoácidos son un grupo heterogéneo de moléculas que poseen unas características estructurales y funcionales comunes
- Existen veinte aminoácidos diferentes especificados en el código genético
- También existen aminoácidos que son intermediaros de ciertas rutas metabólicas
- Como la citrulina y la ornitina en el metabolismo de la arginina y la prolina
- Otros son precursores de muchas sustancias biológicas que contienen nitrógeno
- También existen aminoácidos que son intermediaros de ciertas rutas metabólicas
- En las células, estos veinte aminoácidos se unen mediante enlaces covalentes formando largas cadenas de combinaciones específicas que producen un gran número de proteínas diferentes
- El tamaño puede ser muy variado, desde péptidos formados por un número pequeño de aminoácidos
- Hasta polímeros de una elevadísima masa molecular
- El tamaño puede ser muy variado, desde péptidos formados por un número pequeño de aminoácidos
- Características estructurales comunes
- Los aminoácidos tienen en común la existencia de un átomo de carbono (llamado carbono a) al que se unen los siguientes grupos funcionales
- Un grupo carboxilo (-COOH)
- Un grupo amino (-NH2)
- Un átomo de hidrógeno
- La cuarta valencia del carbono está unida a un radical o cadena lateral, que sirve para diferenciar los veinte aminoácidos que constituyen la mayor parte de las proteínas
- Los nombres de los veinte aminoácidos se pueden representar mediante un código de tres letras
- O utilizando una única letra
- Los aminoácidos que forman las proteínas sólo pertenecen a las formas del enantiómero L
- Aunque se desconoce el motivo por el que se ha elegido esta forma durante la evolución
- Algunos aminoácidos presentan carbonos asimétricos en su cadena lateral, como es el caso de la Thr y la lle
- Aunque se desconoce el motivo por el que se ha elegido esta forma durante la evolución
- Existen formas D en algunos péptidos que forman parte de la composición de las paredes bacterianas
- Estas formas D se forman a partir de las L por la actuación de una enzima (racemasa) que es un frecuente objetivo farmacológico antibacteriano.
- Los aminoácidos tienen en común la existencia de un átomo de carbono (llamado carbono a) al que se unen los siguientes grupos funcionales
- Los aminoácidos se clasifican por las características de su cadena lateral
- La unión covalente de los aminoácidos para formar las proteínas hace que los grupos funcionales amino y carboxilo de todos los aminoácidos, excepto el primero y el último, se vean modificados debido a la formación del enlace peptídico
- En los polipéptidos, la naturaleza química de la cadena lateral de los aminoácidos es la que va a condicionar su solubilidad en agua, su reactividad y el tipo de interacciones no covalentes que se pueden establecer
- Las cadenas laterales de los diferentes aminoácidos pueden ser de naturaleza hidrofóbica (apelar), polar sin carga
- O pueden presentar carga a determinados valores de pH
- Los aminoácidos estrictamente hidrofóbicos son: Ala, Val, Leu, lle, Pro, Phe, Trp y Met
- Todos tienen cadenas laterales alifáticas, menos la Phe y el Trp que, por presentar anillos aromáticos en su estructura, tienen la capacidad de absorber luz ultravioleta a determinadas longitudes de onda
- Los aminoácidos polares sin carga son: Ser, Thr, Tyr, Asn y Gln
- Los tres primeros tienen en común la presencia de un grupo hidroxilo, aunque hay que destacar el carácter aromático de la Tyr
- Los aminoácidos ionizables a pH fisiológico son: Glu, Asp, Lys, Arg e His
- Los dos primeros poseen un grupo carboxilo que se encuentra ionizado en su forma aniónica a pH fisiológico ( -COO)
- Los tres últimos poseen grupos funcionales con carácter básico por lo que pueden captar protones del medio adquiriendo carga positiva
- Los dos primeros poseen un grupo carboxilo que se encuentra ionizado en su forma aniónica a pH fisiológico ( -COO)
- La unión covalente de los aminoácidos para formar las proteínas hace que los grupos funcionales amino y carboxilo de todos los aminoácidos, excepto el primero y el último, se vean modificados debido a la formación del enlace peptídico
- Los aminoácidos presentan carácter ácido y básico
- Como a pH fisiológico los aminoácidos se encuentran en su forma de ión dipolar en realidad el carácter ácido lo presenta el grupo amino protonado y el carácter básico el grupo carboxilo ionizado
- Este tipo de sustancias que pueden actuar como ácidos o como bases se conocen como sustancias anfóteras
- Además algunos aminoácidos tienen un grupo ácido o básico en su cadena lateral
- Este tipo de sustancias que pueden actuar como ácidos o como bases se conocen como sustancias anfóteras
- A un pH muy ácido ambos grupos funcionales se encuentran protonados y la forma dominante es NH; -CH2-COOH
- Por tanto esta molécula puede perder dos protones, el del grupo carboxilo y el del grupo NH; que es ahora un ácido conjugado
- A valores de pH por debajo del punto isoeléctrico la glicina tiene carga neta positiva; y a valores de pH superiores al pi, presenta carga neta negativa
- Por tanto esta molécula puede perder dos protones, el del grupo carboxilo y el del grupo NH; que es ahora un ácido conjugado
- La carga eléctrica de los aminoácidos varía con el pH
- Como puede deducirse de la curva de titulación de la Gly, por debajo del valor de pH del pK del grupo ácido (pK; = 2,34) domina la forma totalmente protonada con carga neta positiva (NH;-cH2-COOH)
- Por encima de este valor empieza a aumentar el porcentaje de moléculas que se encuentran en la forma del ión dipolar
- Con carga neta cero, hasta llegar al pi en el que es la forma dominante
- Los aminoácidos con cadenas laterales con grupos ionizables tienen curvas de titulación más complejas con tres valores de pi
- En el caso de los aminoácidos con cadena lateral con carácter básico, el punto isoeléctrico se calculará como la media aritmética de los pi
- Con carga neta cero, hasta llegar al pi en el que es la forma dominante
- Por encima de este valor empieza a aumentar el porcentaje de moléculas que se encuentran en la forma del ión dipolar
- Como puede deducirse de la curva de titulación de la Gly, por debajo del valor de pH del pK del grupo ácido (pK; = 2,34) domina la forma totalmente protonada con carga neta positiva (NH;-cH2-COOH)
- Existen regiones pH en los que los aminoácidos presentan poder tamponante
- En las zonas próximas a los valores de pi( de ambos grupos (COOH y NH;), se necesita más cantidad de base (NaOH) para que se produzca un aumento en el pH de la solución
- Este efecto se conoce como efecto tamponante y tiene importantes consecuencias biológicas
- Un ejemplo de este poder tamponan te se produce en la hemoglobina
- En esta proteína, los protones liberados duran te el metabolismo celular se unen a un residuo de His evitando una disminución del pH y cambiando, además, su afinidad por el oxígeno
- Un ejemplo de este poder tamponan te se produce en la hemoglobina
- Este efecto se conoce como efecto tamponante y tiene importantes consecuencias biológicas
- En las zonas próximas a los valores de pi( de ambos grupos (COOH y NH;), se necesita más cantidad de base (NaOH) para que se produzca un aumento en el pH de la solución
- El valor del pKª puede variar con el entorno químico de la molécula
- Si comparamos los valores de p.K de los grupos COOH y NH; de la glicina con el de moléculas similares como el ácido acético y la metil amina podemos observar:
- En el primer caso, el valor del p.K del grupo carboxilo de la glicina es mucho más bajo que el del ácido acético, lo que significa que se ioniza más fácilmente.
- En el segundo caso, el valor del p.K del grupo NH; también es menor que el de la metilamina. En este caso se debe al efecto de atracción de los electrones por parte del oxígeno, más electronegativo, que hace que sea más fácil la pérdida del protón
- Este hecho tiene una gran importancia para explicar cómo se producen las reacciones químicas en un entorno concreto en el caso del centro activo de las enzimas
- Si comparamos los valores de p.K de los grupos COOH y NH; de la glicina con el de moléculas similares como el ácido acético y la metil amina podemos observar:
- Como a pH fisiológico los aminoácidos se encuentran en su forma de ión dipolar en realidad el carácter ácido lo presenta el grupo amino protonado y el carácter básico el grupo carboxilo ionizado
- Comportamiento ácido-base de las cadenas laterales
- Las cadenas laterales de ciertos aminoácidos también poseen grupos funcionales con carácter ácido o básico. Estos aminoácidos son: Lys, Arg, His, Asp, Glu, Cys y Tyr.
- Su carácter ácido o básico, va a depender del valor de su pK.
- A pH fisiológico, todos se encontrarán en su forma ácida, excepto la His. Este aminoácido, por tener un pK próximo al fisiológico, sólo se encontrará ionizado en un cierto porcentaje
- El grupo sulfhidrilo de la Cys y el grupo fenol de la Tyr sólo se encuentran ionizados en condiciones muy alcalinas, como se deduce de los valores de su pK
- A pH fisiológico, todos se encontrarán en su forma ácida, excepto la His. Este aminoácido, por tener un pK próximo al fisiológico, sólo se encontrará ionizado en un cierto porcentaje
- Su carácter ácido o básico, va a depender del valor de su pK.
- La importancia biológica de estos grupos funcionales radica en su posibilidad de participar en las reacciones enzimáticas mediante dos procesos diferentes.
- En primer lugar, estos aminoácidos pueden actuar como aceptores o dadores de protones en ciertas reacciones químicas
- Los ácidos pueden actuar como reactivos nucleofílicos y las bases como reactivos electrofílicos en reacciones de ruptura y formación de enlaces
- Por este motivo estos aminoácidos se encuentran con frecuencia en los centros activos de numerosas enzimas
- Los ácidos pueden actuar como reactivos nucleofílicos y las bases como reactivos electrofílicos en reacciones de ruptura y formación de enlaces
- En primer lugar, estos aminoácidos pueden actuar como aceptores o dadores de protones en ciertas reacciones químicas
- Las cadenas laterales de ciertos aminoácidos también poseen grupos funcionales con carácter ácido o básico. Estos aminoácidos son: Lys, Arg, His, Asp, Glu, Cys y Tyr.
- Las propiedades de las cadenas laterales determinan las interacciones no covalentes
- El análisis de las características estructurales y la presencia de ciertos grupos funcionales permiten entender las relaciones que se pueden establecer entre distintas partes de la misma molécula o entre la proteína y otras moléculas
- Hidrofobicidad
- Muchos aminoácidos presentan una cadena lateral totalmente apolar
- Teniendo en cuenta que las proteínas suelen encontrarse en un entorno acuoso, las cadenas laterales apolares tienden a agruparse
- Muchos aminoácidos presentan una cadena lateral totalmente apolar
- Fuerzas de Van der Waals
- En las cadenas laterales de los aminoácidos apolares se pueden crear dipolos instantáneos que pueden crear fuerzas de atracción intermoleculares muy débiles
- Pero pueden tener un efecto importante en la determinación de la estructura tridimensional de las proteínas
- En las cadenas laterales de los aminoácidos apolares se pueden crear dipolos instantáneos que pueden crear fuerzas de atracción intermoleculares muy débiles
- Formación de puentes de hidrógeno
- En el primer caso se encuentran las cadenas laterales de los aminoácidos Ser, Tyr, Thr, Trp, Gin, Asn, His y Cys
- En todos los casos, existe un átomo de hidrógeno unido a un átomo más electronegativo que hace que se cree una densidad de carga positiva en el átomo de hidrógeno
- Las cadenas laterales que poseen grupos funcionales con átomos con densi dad de carga negativa que pueden actuar como aceptores en la formación de puentes de hidrógeno son:
- Tyr, Glu, Asp, Ser, Thr, Asn, Gin, His y, en ocasio nes, la Cys.
- Las cadenas laterales que poseen grupos funcionales con átomos con densi dad de carga negativa que pueden actuar como aceptores en la formación de puentes de hidrógeno son:
- En todos los casos, existe un átomo de hidrógeno unido a un átomo más electronegativo que hace que se cree una densidad de carga positiva en el átomo de hidrógeno
- En el primer caso se encuentran las cadenas laterales de los aminoácidos Ser, Tyr, Thr, Trp, Gin, Asn, His y Cys
- Interacciones electrostáticas
- Las cadenas laterales de algunos aminoácidos presentan grupos funcionales con carácter ácido o básico
- Como consecuencia, pueden estar ionizados a deter minados valores de pH
- Dado que cargas de signos opues tos se atraen, se pueden crear interacciones no covalentes entre las cadenas latera les de estos aminoácidos que, por su semejanza a las interacciones iónicas que se dan en las sales, se denominan con frecuencia puentes salinos
- Como consecuencia, pueden estar ionizados a deter minados valores de pH
- Las cadenas laterales de algunos aminoácidos presentan grupos funcionales con carácter ácido o básico
- Hidrofobicidad
- El análisis de las características estructurales y la presencia de ciertos grupos funcionales permiten entender las relaciones que se pueden establecer entre distintas partes de la misma molécula o entre la proteína y otras moléculas
- Unión de elementos metálicos
- La unión covalente a proteínas de cationes divalentes (Mg2+, Ca2+, Zn2+) y algunos metales de transición (Fe, Cu, Ni, etc.)
- La unión de estos elementos metálicos tiene una gran importancia en la función de la proteína, permitiendo, en algunas ocasiones, su participación directa en ciertas reacciones químicas o, simplemente, estabilizando su estructura tridimensional
- La incorporación de estos elementos metálicos aumenta las posibilidades de las proteínas para participar en ciertas reacciones, como ocurre en las reacciones de transferencia de electrones.
- Los aminoácidos con cadenas laterales ionizables también pueden establecer interacciones con elementos metálicos pero, en este caso, mediante interacciones no covalentes iónicas
- Otra muestra de interacción de proteínas con Ca2+ se da en un tipo de proteínas de adhesión entre células: las cadherinas
- Los aminoácidos con cadenas laterales ionizables también pueden establecer interacciones con elementos metálicos pero, en este caso, mediante interacciones no covalentes iónicas
- La unión covalente a proteínas de cationes divalentes (Mg2+, Ca2+, Zn2+) y algunos metales de transición (Fe, Cu, Ni, etc.)
- Las cadenas Laterales pueden establecer enlaces covalentes
- Ciertos residuos tienen en su cadena lateral grupos funcionales que permiten la formación de enlaces covalentes que pueden establecerse entre dos aminoácidos o entre ciertos aminoácidos y grupos funcionales de otras moléculas
- Formación de puentes disulfuro
- Dos residuos de Cys pueden unirse covalentemente mediante la formación de un enlace disulfuro mediante un proceso de oxidación
- Este tipo de entrecruzamiento se puede dar entre dos Cys de la misma proteína (intracatenarios) o entre dos Cys de cadenas diferentes (intercatenarios).
- La reacción requiere un ambiente oxidante, por lo que estos enlaces no son habituales en las proteínas intracelulares que se encuentran en el ambiente reductor del citosol
- Estos enlaces estabilizan la estructura tridimensional de las proteínas, que se mantiene gracias a las interacciones no covalentes, haciéndolas menos susceptibles a la degradación
- La reacción requiere un ambiente oxidante, por lo que estos enlaces no son habituales en las proteínas intracelulares que se encuentran en el ambiente reductor del citosol
- Este tipo de entrecruzamiento se puede dar entre dos Cys de la misma proteína (intracatenarios) o entre dos Cys de cadenas diferentes (intercatenarios).
- Dos residuos de Cys pueden unirse covalentemente mediante la formación de un enlace disulfuro mediante un proceso de oxidación
- Fosforilación
- Las cadenas laterales de los aminoácidos Ser, Thr y Tyr pueden sufrir un proce so de fosforilación por la unión a su grupo hidroxilo (OH) de una molécula de fosfato inorgánico
- La fosforilación de proteínas es un proceso que tiene un papel destacado en muchos procesos biológicos siendo un medio muy común de regulación de la actividad proteica
- En el caso de las enzimas, la fosforilación puede hacer que se pase de una forma activa a una inactiva o viceversa.
- La fosforilación de proteínas es un proceso que tiene un papel destacado en muchos procesos biológicos siendo un medio muy común de regulación de la actividad proteica
- Las cadenas laterales de los aminoácidos Ser, Thr y Tyr pueden sufrir un proce so de fosforilación por la unión a su grupo hidroxilo (OH) de una molécula de fosfato inorgánico
- Glucosilación
- En las células eucariotas los azúcares se pueden unir de forma covalente a las proteínas mediante la formación de un enlace oglucosídico
- También se puede formar un enlace N-glucosídico si la unión se realiza con el grupo amino de la cadena lateral de la Asn
- En las células eucariotas los azúcares se pueden unir de forma covalente a las proteínas mediante la formación de un enlace oglucosídico
- Formación de puentes disulfuro
- Ciertos residuos tienen en su cadena lateral grupos funcionales que permiten la formación de enlaces covalentes que pueden establecerse entre dos aminoácidos o entre ciertos aminoácidos y grupos funcionales de otras moléculas
- La estereoquímica de Las cadenas Laterales es fundamental para comprender La estructura tridimensional de las proteínas
- La geometría y distribución espacial de los enlaces de los átomos que forman las cadenas laterales también va tener una gran importancia a la hora de determinar el plegamiento de las proteínas y sus relaciones con otras moléculas
- El tamaño y la forma de las cadenas laterales condiciona el tipo de interacciones que pueden darse con otros grupos funcionales, teniendo en cuenta sus radios de Van der Waals
- En las cadenas alifáti cas, la superficie de la cadena lateral que queda expuesta hacia el exterior va a influir sobre la hidrofobicidad general del residuo.
- El tamaño y la forma de las cadenas laterales condiciona el tipo de interacciones que pueden darse con otros grupos funcionales, teniendo en cuenta sus radios de Van der Waals
- Los átomos de cualquier cadena lateral más larga que la Ala tienen la posibilidad de disponerse en el espacio adoptando diferentes posiciones relativas o conformaciones
- Se ha podido comprobar que la disposición alterna es la más favorable desde el punto de vista energético
- En esta conformación, los sustituyentes de un átomo de carbono se sitúan en la posición que dejan los del átomo siguiente, como puede verse si se observa la molécula a lo largo del eje de rotación
- Se ha podido comprobar que la disposición alterna es la más favorable desde el punto de vista energético
- La geometría y distribución espacial de los enlaces de los átomos que forman las cadenas laterales también va tener una gran importancia a la hora de determinar el plegamiento de las proteínas y sus relaciones con otras moléculas
- Modificacionesquímicas de los aminoácidos en las proteínas
- Existen otros aminoácidos que sufren modificaciones después de estar incorporados en la cadena polipeptídica. Estos aminoácidos "no estándares" a veces tienen un papel biológico importante.
- En la molécula de colágeno existen dos de estos aminoácidos: la 4-hidroxi prolina y la 5-hidroxilisina
- En ambos casos la modificación consiste en la adición de un grupo hidroxilo y cada reacción esta catalizada por una enzima específica
- Algunos aminoácidos de las proteínas que forman complejos con los ácidos nucleicos también están modificados.
- En ambos casos la modificación consiste en la adición de un grupo hidroxilo y cada reacción esta catalizada por una enzima específica
- En la molécula de colágeno existen dos de estos aminoácidos: la 4-hidroxi prolina y la 5-hidroxilisina
- El ácido ycarboxiglutámico, producido por una modificación postraduccional dependiente de vitamina K, se encuentra en la protrombina, una de las proteínas que intervienen en la coagulación de la sangre, y en otros factores de coagulación.
- Con dos grupos carboxilo, tiene una gran capacidad para fijar cationes Ca2+.
- Existen otros aminoácidos que sufren modificaciones después de estar incorporados en la cadena polipeptídica. Estos aminoácidos "no estándares" a veces tienen un papel biológico importante.
- Aminoácidos no presentes en las proteínas
- Es frecuente que algunos compuestos derivados de aminoácidos funcionen como mensajeros químicos
- Un ejemplo de esta función son los neurotransmisores como el GABA (ácido vaminobutírico), que se produce por la descarboxilación del glutamato y es un neurotransmisor con función inhibitoria
- El receptor del GABA es un blanco frecuente de fármacos que reducen la ansiedad como los barbitúricos
- Un ejemplo de esta función son los neurotransmisores como el GABA (ácido vaminobutírico), que se produce por la descarboxilación del glutamato y es un neurotransmisor con función inhibitoria
- Forman parte de procesos metabólicos como por ejemplo para la síntesis de otro amoniácido como la arginina que son intermediarios en la síntesis de urea
- La dopamina, un derivado de la Tyr, es un neurotransmisor relacionado con la enfermedad de Parkinson que también se utiliza como fármaco en el sistema periférico para aumentar la frecuencia cardiaca y producir dilatación de los vasos sanguíneos renales
- Es frecuente que algunos compuestos derivados de aminoácidos funcionen como mensajeros químicos
- Existen veinte aminoácidos diferentes especificados en el código genético
- ENLACE PEPTÍDICO
- Se forma por la condensación entre el alcohol y un hidrógeno del grupo carboxilo del grupo amino respectivamente, y el carbono queda unido al nitrógeno
- La vida media de un enlace peptídico es de 7 años
- Los aminoácidos incorporados en la cadena poli peptídica se denominan residuos por la pérdida de agua que se produce en la reacción.
- Como consecuencia de este proceso sólo el grupo amino del primer aminoácido (grupo amino terminal) y el grupo carboxilo del último ( carboxilo terminal) tienen capacidad de ionización
- Es importante conocer la carga de un polipéptido a un determinado valor de pH porque permite predecir el tipo de interacciones que pueden darse, dentro de la misma cadena o con otras moléculas
- Características estructurales
- El enlace peptídico tiene una estructura plana y rígida. Esto se debe a que existe un fenómeno de resonancia de los electrones del grupo carbonilo entre los tres átomos del enlace O-C-N que hace que el enlace C-N tenga un cierto carácter de doble enlace que no permite la rotación sobre su eje.
- La limitación del giro del enlace C-N hace que sólo existan dos posibles configuraciones alrededor de este enlace
- Cis, con el átomo de H y el grupo carbonilo en el mismo lado del eje
- La forma cis presenta mayores restricciones estéricas
- Un ejemplo de configuración cis se da en la molécula de colágeno
- La forma cis presenta mayores restricciones estéricas
- Trans, con ambos átomos en posiciones alternas
- La posición trans es la que se da de forma mayoritaria en las proteínas
- Cis, con el átomo de H y el grupo carbonilo en el mismo lado del eje
- La conformación del polipéptido dependerá de los ángulos de torsión que se adopten alrededor de este punto
- Aunque el enlace permita el giro, hay que te ner en cuenta que no todas las posiciones son posibles debido a las restricciones estéricas de los átomos del esqueleto polipeptídico y de las cadenas laterales concretas de cada aminoácido
- La Gly, con un único átomo de hidrógeno como cadena lateral, tendrá mayores posibilidades de giro que aquellos que tienen cadenas laterales más voluminosas
- Aunque el enlace permita el giro, hay que te ner en cuenta que no todas las posiciones son posibles debido a las restricciones estéricas de los átomos del esqueleto polipeptídico y de las cadenas laterales concretas de cada aminoácido
- La limitación del giro del enlace C-N hace que sólo existan dos posibles configuraciones alrededor de este enlace
- El enlace peptídico tiene una estructura plana y rígida. Esto se debe a que existe un fenómeno de resonancia de los electrones del grupo carbonilo entre los tres átomos del enlace O-C-N que hace que el enlace C-N tenga un cierto carácter de doble enlace que no permite la rotación sobre su eje.
- El enlace peptídico permite la formación de puentes de hidrógeno
- Si analizamos la electronegatividad de los átomos que componen el enlace peptídico podemos observar que se trata de una estructura polar y, por tanto, hidrofílica
- Sus componentes pueden formar enlaces de puente de hidrógeno ya que posee un grupo carbonilo con una densidad de carga negativa que puede actuar como aceptar, y un hidrógeno que puede actuar como donador
- La excepción se produce otra vez cuando en el enlace participa una Pro que carece del átomo de H unido al N
- Sus componentes pueden formar enlaces de puente de hidrógeno ya que posee un grupo carbonilo con una densidad de carga negativa que puede actuar como aceptar, y un hidrógeno que puede actuar como donador
- Si analizamos la electronegatividad de los átomos que componen el enlace peptídico podemos observar que se trata de una estructura polar y, por tanto, hidrofílica
- Péptidos de interés biológico
- La insulina, péptido formado por dos cadenas unidas por puentes disulfuro, desempeña un importante papel en el metabolismo de los hidratos de carbono
- Las moléculas de insulina de diferentes especies muestran pequeñas variaciones que revelan cuáles son los residuos indispensables para su función biológica
- La vasopresina y la oxitocina, que actúan como hormonas y como neuro transmisores, son dos péptidos de nueve aminoácidos con una secuencia seme jante (sólo se diferencian en dos aminoácidos).
- Las moléculas de insulina de diferentes especies muestran pequeñas variaciones que revelan cuáles son los residuos indispensables para su función biológica
- La insulina, péptido formado por dos cadenas unidas por puentes disulfuro, desempeña un importante papel en el metabolismo de los hidratos de carbono
- Características estructurales
- Es importante conocer la carga de un polipéptido a un determinado valor de pH porque permite predecir el tipo de interacciones que pueden darse, dentro de la misma cadena o con otras moléculas
- Se forma por la condensación entre el alcohol y un hidrógeno del grupo carboxilo del grupo amino respectivamente, y el carbono queda unido al nitrógeno
- Los aminoácidos son un grupo heterogéneo de moléculas que poseen unas características estructurales y funcionales comunes
NUCLEÓTIDOS Y ÁCIDOS NUCLEICOS
- Los nucleótidos participan en multitud de funciones celulares. Colaboran en funciones de oxidorreducción, transferencia de energía, señales intracelulares y reacciones de biosíntesis
- Además, son los constituyentes de los ácidos nucleicos: ácido desoxirribonucleico (DNA) y ácido ribonucleico (RNA), las principales moléculas participantes en el almacenamiento y la descodificación de la información genética
- Las funciones del DNA son el almacenamiento y la transmisión de la información biológica
- En el DNA se encuentran especificadas las secuencias de aminoácidos de todas las proteínas y las secuencias de nucleótidos de todas las moléculas de RNA
- Nucleósidosy nucleótidos
- Composición química y estructura
- Los nucleótidos están constituidos por tres componentes característicos:
- Una base nitrogenada
- Las bases nitrogenadas son moléculas planas, aromáticas, heterocíclicas, que derivan de la purina o de la pirimidina
- Las bases púricas más comunes son la adenina (A) y la guanina (G)
- Ambas aparecen tanto en el DNA como en el RNA
- La citosina se encuentra en ambos tipos de ácidos nucleicos, pero la timina sólo aparece en el DNA y el uracilo únicamente en el RNA
- Ambas aparecen tanto en el DNA como en el RNA
- Las bases púricas más comunes son la adenina (A) y la guanina (G)
- Las bases nitrogenadas son moléculas planas, aromáticas, heterocíclicas, que derivan de la purina o de la pirimidina
- Una pentosa
- A los átomos de las pentosas de los nucleótidos se les añade el signo prima (') para distinguirlos de los átomos de las bases nitrogenadas
- En los ribonucleó tidos, la pentosa es la nribosa, mientras que en los desoxirribonucleótidos (de soxinucleótidos) el azúcar es la 2'desoxioribosa
- Ambos tipos de pentosas se encuentran en forrna B. El compuesto resultante de la unión de una base más la pentosa es un nucleósido
- En los ribonucleó tidos, la pentosa es la nribosa, mientras que en los desoxirribonucleótidos (de soxinucleótidos) el azúcar es la 2'desoxioribosa
- A los átomos de las pentosas de los nucleótidos se les añade el signo prima (') para distinguirlos de los átomos de las bases nitrogenadas
- Al menos un grupo fosfato
- El grupo fosfato se une en la posición 5' de la pentosa normalmente, aunque también puede aparecen en otras posiciones
- La base más la pentosa más el fosfato constituyen el nucleótido
- En las células también aparecen nucleótidos con grupos fosfato en posiciones diferentes del carbono 5', como los ribonucleósidos
- La base más la pentosa más el fosfato constituyen el nucleótido
- El grupo fosfato se une en la posición 5' de la pentosa normalmente, aunque también puede aparecen en otras posiciones
- Una base nitrogenada
- Los nucleótidos están constituidos por tres componentes característicos:
- Composición química y estructura
- Los nucleótidos de los ácidos nucleicos están unidos por enlaces fosfodiéster
- Los nucleótidos pueden unirse unos a otros para formar el DNA o el RNA
- La unión se realiza mediante "puentes" de grupos fosfato, en los cuales el grupo OH en la posición 5' de un nucleótido está unido al grupo OH del siguien te mediante un enlace fosfodiéster
- Todos los enlaces fosfodiéster tienen la misma orientación a lo largo de la cadena
- Un ácido nucleico de cadena corta se denomina oligonucleótido (general mente hasta 50 nucleótidos)
- Los ácidos nucleicos de mayor longitud se denominan polinucleótidos.
- Un ácido nucleico de cadena corta se denomina oligonucleótido (general mente hasta 50 nucleótidos)
- Todos los enlaces fosfodiéster tienen la misma orientación a lo largo de la cadena
- La unión se realiza mediante "puentes" de grupos fosfato, en los cuales el grupo OH en la posición 5' de un nucleótido está unido al grupo OH del siguien te mediante un enlace fosfodiéster
- Los nucleótidos pueden unirse unos a otros para formar el DNA o el RNA
- ESTRUCTURA Y FUNCIÓN DEL DNA
- Las moléculas de DNA tienen diferente composición de bases
- La composición de las bases del DNA generalmente varía de una especie a otra.
- Las muestras de DNA aisladas de los diferentes tejidos de la misma especie se componen de las mismas bases.
- La composición de bases del DNA de una determinada especie no varía con la edad del organismo, ni con su estado nutricional, ni con las variaciones ambientales.
- En todos los DNA de diferentes especies, el número de los residuos de adenina es igual al de los residuos de timina (A= T), y el número de resi duos de guanina es igual al número de residuos de citosina (G = C). A
- La composición de bases del DNA de una determinada especie no varía con la edad del organismo, ni con su estado nutricional, ni con las variaciones ambientales.
- Las muestras de DNA aisladas de los diferentes tejidos de la misma especie se componen de las mismas bases.
- La composición de las bases del DNA generalmente varía de una especie a otra.
- El DNA es una doble hélice
- Existen dos cadenas de polinucleótidos enrolladas alrededor de un eje común, formando una doble hélice
- Las dos cadenas del DNA son antiparalelas (es decir, transcurren en direcciones opuestas), pero cada una forma una hélice dextrógira (la diferencia entre una hélice dextrógira y una levógira se muestra en la figura 69).
- Las bases ocupan el centro de la hélice y las cadenas de azúcares y fosfatos se sitúan en el exterior
- Cada base está unida por puentes de hidrógeno a una base de la hebra opuesta, para formar un par de bases plano.
- Cada residuo de adenina debe formar pareja con un residuo de timina y viceversa, y cada residuo de guanina debe aparearse con un residuo de citosina y viceversa
- La doble hélice del DNA se mantiene unida por dos tipos de fuerzas
- Los enlaces de hidrógeno entre los pares de bases complementarias, y las interacciones de apilamiento de las bases
- La doble hélice del DNA se mantiene unida por dos tipos de fuerzas
- Cada residuo de adenina debe formar pareja con un residuo de timina y viceversa, y cada residuo de guanina debe aparearse con un residuo de citosina y viceversa
- Cada base está unida por puentes de hidrógeno a una base de la hebra opuesta, para formar un par de bases plano.
- Las bases ocupan el centro de la hélice y las cadenas de azúcares y fosfatos se sitúan en el exterior
- Las dos cadenas del DNA son antiparalelas (es decir, transcurren en direcciones opuestas), pero cada una forma una hélice dextrógira (la diferencia entre una hélice dextrógira y una levógira se muestra en la figura 69).
- Existen dos cadenas de polinucleótidos enrolladas alrededor de un eje común, formando una doble hélice
- Las moléculas de DNA tienen diferente composición de bases
- ESTRUCTURA Y FUNCIÓN DEL RNA
- El RNA ribosómico (rRNA) es el componente principal de los ribosomas, constituyendo hasta un 65% de su peso total.
- El RNA de transferencia (tRNA) consta de alrededor de 75 nucleótidos, siendo una de las moléculas de RNA más pequeñas.
- El RNA mensajero (mRNA) es el menos abundante de los RNA, consti tuyendo del 5 al 10% de todo el RNA celular
- El RNA nuclear pequeño (snRNA) es una molécula de reciente descubri miento. Se encuentra en el núcleo de las células eucariotas
- El RNA mensajero (mRNA) es el menos abundante de los RNA, consti tuyendo del 5 al 10% de todo el RNA celular
- El RNA de transferencia (tRNA) consta de alrededor de 75 nucleótidos, siendo una de las moléculas de RNA más pequeñas.
- El RNA ribosómico (rRNA) es el componente principal de los ribosomas, constituyendo hasta un 65% de su peso total.
- NUCLEÓTIDOS CON OTRAS FUNCIONES
- El ATP es la moneda de intercambio energético de la célula
- El ATP es un ribonucleótido constituido por adenina y ribosa
- A la que se unen en forma secuencial tres grupos fosfato por medio de un enlace fosfoéster seguido de dos enlaces fosfoanhídrido
- La importancia biológica del ATP radica en la gran cantidad de energía libre que acompaña a la rotura de los enlaces fosfoanhídrido
- A la que se unen en forma secuencial tres grupos fosfato por medio de un enlace fosfoéster seguido de dos enlaces fosfoanhídrido
- El ATP es un ribonucleótido constituido por adenina y ribosa
- El ATP es la moneda de intercambio energético de la célula
- Ciertos nucleótidos son importantes coenzimas
- Diversas enzimas catalizan reacciones de oxidación y reducción en la célula
- Las enzimas que catalizan las oxidaciones celulares canalizan los electrones desde multitud de sustratos diferentes a tan sólo unos cuantos tipos de transportadores de electrones
- El NAD+ actúa generalmente en oxidaciones, como parte de una reacción catabólica
- El FAD (dinucleótido de flavina y adenina) y el FMN (mononucleótido de flavi na) son dos nucleótidos de flavina que se unen a flavoproteínas, en zimas que catalizan reacciones de oxidaciónreducción
- Existen otros nucléotidos que no forman parte de los ácidos nucleicos y que desempeñan funciones biológicas muy importantes
- El adenosín monofosfato cíclico es un nucleótido que actúa como segundo mensajero de diversos procesos biológicos
- Se produce a partirdel ATP gracias a la acción de la adenilato ciclasa
- La coenzima A (CoA) es una molécula que desempeña un papel central en el metabolismo
- Actúa como transportador de acetilo y otros grupos acilo
- El adenosín monofosfato cíclico es un nucleótido que actúa como segundo mensajero de diversos procesos biológicos
- Existen otros nucléotidos que no forman parte de los ácidos nucleicos y que desempeñan funciones biológicas muy importantes
- El FAD (dinucleótido de flavina y adenina) y el FMN (mononucleótido de flavi na) son dos nucleótidos de flavina que se unen a flavoproteínas, en zimas que catalizan reacciones de oxidaciónreducción
- El NAD+ actúa generalmente en oxidaciones, como parte de una reacción catabólica
- Las enzimas que catalizan las oxidaciones celulares canalizan los electrones desde multitud de sustratos diferentes a tan sólo unos cuantos tipos de transportadores de electrones
- Diversas enzimas catalizan reacciones de oxidación y reducción en la célula
- Además, son los constituyentes de los ácidos nucleicos: ácido desoxirribonucleico (DNA) y ácido ribonucleico (RNA), las principales moléculas participantes en el almacenamiento y la descodificación de la información genética
- Los nucleótidos participan en multitud de funciones celulares. Colaboran en funciones de oxidorreducción, transferencia de energía, señales intracelulares y reacciones de biosíntesis
Es un polímero de aminoácidos unidos por enlaces peptídicos, por más de 50 aminoácidos
- Son macromoléculas compuestas por una o varias cadenas polipeptídicas las cuales tienen secuencias específicas de aminoácidos unidos por enlaces
- NIVELES ESTRUCTURALES DE LAS PROTEÍNAS
- En las condiciones celulares, las proteínas se encuentran en unas conformaciones limitadas que son las más estables desde el punto de vista energético (menor energía libre de Gibbs)
- La estructura tridimensional de las proteínas está determina da por la identidad de los aminoácidos que la componen y por el orden concreto en que estos aminoácidos se disponen en la cadena, es decir, por su secuencia, que determina su estructura primaria
- Algunas zonas de esta cadena adquieren una disposición espacial concreta denominada estructura secundaria (helicoidal, plegamiento B estructura al azar) que se debe a las interacciones en tre los residuos próximos en la secuencia de aminoácidos
- Existe la posibilidad de que varias cadenas proteicas o subunidades (que pueden ser iguales o diferentes) se asocien en complejos tridimensionales que componen la estructura cuaternaria de las proteínas
- Esta asociación de diversas unidades es esencial para la función de la proteína
- Considerando los niveles de organización de las proteínas, éstas se suelen clasificar en dos grandes grupos:
- Globulares
- Se caracterizan por tener una forma esférica, ser solubles en medios acuosos y presentar diferentes estructuras secundarias en una misma molécula
- Fibrosas
- Suelen presentar una única estructura secundaria, se disponen en forma de largas hebras y son insolubles en agua
- Globulares
- Considerando los niveles de organización de las proteínas, éstas se suelen clasificar en dos grandes grupos:
- Esta asociación de diversas unidades es esencial para la función de la proteína
- Existe la posibilidad de que varias cadenas proteicas o subunidades (que pueden ser iguales o diferentes) se asocien en complejos tridimensionales que componen la estructura cuaternaria de las proteínas
- Algunas zonas de esta cadena adquieren una disposición espacial concreta denominada estructura secundaria (helicoidal, plegamiento B estructura al azar) que se debe a las interacciones en tre los residuos próximos en la secuencia de aminoácidos
- Los estudios de mutagénesis dirigida permiten estudiar los residuos esenciales para su estructura y función
- No todos los residuos de una proteína participan en igual medida en el man tenimiento de su estructura tridimensional y en su función biológica.
- La forma habitual de identificar un aminoácido concreto en una proteína es referirse a su posición dentro de ella, numerándolos en orden ascendente desde el extremo N-terminal hasta el extremo C-terminal
- Una forma de estudiar aquellos residuos que son más importantes en estos aspectos, consiste en realizar experimentos de mutagénesis dirigida mediante los cuales se sustituye un aminoácido concreto por otro
- Los aminoácidos más importantes para una proteína concreta se mantienen invariables en las proteínas de especies biológicas distintas que comparten un antepasado común (proteínas homólogadas).
- Sin embargo, la selección natural sí permite que se mantengan proteínas con mutaciones en aminoácidos que no son fundamentales para su estructura y su función.
- Los aminoácidos más importantes para una proteína concreta se mantienen invariables en las proteínas de especies biológicas distintas que comparten un antepasado común (proteínas homólogadas).
- Una forma de estudiar aquellos residuos que son más importantes en estos aspectos, consiste en realizar experimentos de mutagénesis dirigida mediante los cuales se sustituye un aminoácido concreto por otro
- La forma habitual de identificar un aminoácido concreto en una proteína es referirse a su posición dentro de ella, numerándolos en orden ascendente desde el extremo N-terminal hasta el extremo C-terminal
- No todos los residuos de una proteína participan en igual medida en el man tenimiento de su estructura tridimensional y en su función biológica.
- El interior de Las proteínas es hidrofóbico
- Los primeros estudios que determinaron la estructura tridimensional de una proteína se llevaron a cabo en la mioglobina, una proteína globular
- Que los residuos hidrofóbicos de esta proteína se empaquetan densamente formando un núcleo central de naturaleza apolar
- Esta disposición es favorable ya que disminuye el número de moléculas de agua que interaccionan con la superficie de la molécula (capa de solvatación) y se produce un aumento favorable de la entropía
- Se crean puentes de hidrógeno entre los átomos polares del enlace peptídico de los residuos que quedan en el núcleo hidrofóbico mediante la formación de estructuras secundarias regulares (a hélice y lámina p)
- Esta disposición es favorable ya que disminuye el número de moléculas de agua que interaccionan con la superficie de la molécula (capa de solvatación) y se produce un aumento favorable de la entropía
- Que los residuos hidrofóbicos de esta proteína se empaquetan densamente formando un núcleo central de naturaleza apolar
- Los primeros estudios que determinaron la estructura tridimensional de una proteína se llevaron a cabo en la mioglobina, una proteína globular
- Estructuras secundarias frecuentes en las proteínas
- La a hélice se estabiliza por enlaces de puente de hidrógeno intracatenarios de residuos próximos en la secuencia
- Se trata de una estructura helicoidal con un enrollamiento dextrógiro
- Cada giro incluye 3,6 residuos por vuelta, lo que produce que los residuos que están a una distancia de tres o cuatro residuos se encuentren espacialmente muy cercanos
- Mientras que los que se encuentran a una distancia de dos residuos se sitúen en lados opuestos.
- Los enlaces de puente de hidrógeno crean una conexión en el conjunto de la hélice que hace que se transmita el dipolo característico del enlace peptídico a lo largo del eje longitudinal de toda la molécula
- Lo que proporciona una carga parcial positiva en el extremo amino terminal y una carga parcial negativa en el extremo C- terminal
- Las cadenas laterales de los aminoácidos se disponen hacia el exterior de la hélice evitando interferencias estéricas con el esqueleto polipeptídico
- Los aminoácidos que se encuentran con más frecuencia son Ala, Glu, Leu y Met
- Teniendo en cuenta su estructura, las cadenas laterales que pueden interaccionar son las de los aminoácidos situados a 3 ó 4 residuos en la secuencia primaria
- Una proteína fibrosa con estructura de a hélice es la queratina, el componente principal del pelo, las plumas, las uñas, los cuernos y las células muertas de la epidermis
- Teniendo en cuenta su estructura, las cadenas laterales que pueden interaccionar son las de los aminoácidos situados a 3 ó 4 residuos en la secuencia primaria
- Los aminoácidos que se encuentran con más frecuencia son Ala, Glu, Leu y Met
- Las cadenas laterales de los aminoácidos se disponen hacia el exterior de la hélice evitando interferencias estéricas con el esqueleto polipeptídico
- Lo que proporciona una carga parcial positiva en el extremo amino terminal y una carga parcial negativa en el extremo C- terminal
- Los enlaces de puente de hidrógeno crean una conexión en el conjunto de la hélice que hace que se transmita el dipolo característico del enlace peptídico a lo largo del eje longitudinal de toda la molécula
- Mientras que los que se encuentran a una distancia de dos residuos se sitúen en lados opuestos.
- Cada giro incluye 3,6 residuos por vuelta, lo que produce que los residuos que están a una distancia de tres o cuatro residuos se encuentren espacialmente muy cercanos
- Se trata de una estructura helicoidal con un enrollamiento dextrógiro
- Los giros B son estructuras frecuentes
- Los giros B son un tercer tipo de estructura secundaria que aparece de forma bastante frecuente en las proteínas
- Está compuesta por cuatro residuos que se disponen de tal forma que permiten que se produzca un cambio de dirección de la cadena polipeptídica de 180º
- Aunque en estas estructuras participan pocos residuos, son muy frecuentes en las proteínas y permiten a la molécua que adopte su estructura terciaria característica
- Dentro del conjunto de la molécula, es frecuente que estos giros se localicen en la zona de la superficie donde los grupos que no forman enlaces de hidrógeno
- Los giros participan frecuentemente en la formación de sitios de unión de ligandos (como en el caso de los lugares de reconocimiento de los anticuerpos) y de centros activos de las enzimas
- Los giros no se suelen disponer al azar sino que forman un número limitado de estructuras.
- Los giros participan frecuentemente en la formación de sitios de unión de ligandos (como en el caso de los lugares de reconocimiento de los anticuerpos) y de centros activos de las enzimas
- Dentro del conjunto de la molécula, es frecuente que estos giros se localicen en la zona de la superficie donde los grupos que no forman enlaces de hidrógeno
- Aunque en estas estructuras participan pocos residuos, son muy frecuentes en las proteínas y permiten a la molécua que adopte su estructura terciaria característica
- Está compuesta por cuatro residuos que se disponen de tal forma que permiten que se produzca un cambio de dirección de la cadena polipeptídica de 180º
- Los giros B son un tercer tipo de estructura secundaria que aparece de forma bastante frecuente en las proteínas
- Las láminas B son estructuras plegadas
- Pauling y Corey descubrieron otra estructura con un patrón periódico a la que denominaron lámina.
- Esta estructura surge de la interacción de algunas regiones de la cadena polipeptídicalas hebras B que suelen tener una longitud que varía entre cinco y diez residuos
- Esta estructura surge de la interacción de algunas regiones de la cadena polipeptídicalas hebras B que suelen tener una longitud que varía entre cinco y diez residuos
- Las hebras pueden pertenecer a cadenas polipeptídicas diferentes o pueden ser partes diferentes de la misma cadena.
- Hay dos tipos de láminas B dependiendo de la orientación que presenten las hebras que la componen
- Si todas las hebras se disponen con la misma orientación de sus grupos amino y carboxilo terminales, se denominan láminas B paralelas
- Se disponen de forma alternada, se trata de láminas B antiparalelas
- El período de repetición es más corto en la conformación paralela y también varían los patrones de los puentes de hidrógeno
- En ambos casos sólo los átomos de las hebras de los extremos quedan sin formar enlaces de hidrógeno
- El período de repetición es más corto en la conformación paralela y también varían los patrones de los puentes de hidrógeno
- Se disponen de forma alternada, se trata de láminas B antiparalelas
- Si todas las hebras se disponen con la misma orientación de sus grupos amino y carboxilo terminales, se denominan láminas B paralelas
- Hay dos tipos de láminas B dependiendo de la orientación que presenten las hebras que la componen
- Las hebras pueden pertenecer a cadenas polipeptídicas diferentes o pueden ser partes diferentes de la misma cadena.
- Esta estructura surge de la interacción de algunas regiones de la cadena polipeptídicalas hebras B que suelen tener una longitud que varía entre cinco y diez residuos
- Esta estructura surge de la interacción de algunas regiones de la cadena polipeptídicalas hebras B que suelen tener una longitud que varía entre cinco y diez residuos
- Pauling y Corey descubrieron otra estructura con un patrón periódico a la que denominaron lámina.
- Las estructuras secundarias se agrupan formando motivos que forman estructuras globulares o dominios
- Los elementos denominados motivos o estructuras su persecundarias son combinaciones de varios elementos con estructura secundaria definida con una disposición geométrica característica
- Algunos motivos tienen funciones biológicas específicas, como la unión a DNA o a calcio, pero otros simplemente forman parte de otras unidades estructurales y funcionales.
- Las proteínas que pueden fijar calcio, comola parvalbúmina, la troponina c y la calmodulina, pueden participar en actividades reguladas por la presencia de este catión, como la contracción y relajación muscular.
- En algunas proteínas se encuentran estructuras globulares bien definidas formadas por la combinación de varios motivos que se denominan dominios.
- Se definen como la parte de la cadena que se puede plegar de forma independiente formando una estructura terciaria estable, y son unidades estructurales que suelen ser también unidades de función
- En algunas proteínas se encuentran estructuras globulares bien definidas formadas por la combinación de varios motivos que se denominan dominios.
- Las proteínas que pueden fijar calcio, comola parvalbúmina, la troponina c y la calmodulina, pueden participar en actividades reguladas por la presencia de este catión, como la contracción y relajación muscular.
- Algunos motivos tienen funciones biológicas específicas, como la unión a DNA o a calcio, pero otros simplemente forman parte de otras unidades estructurales y funcionales.
- Los elementos denominados motivos o estructuras su persecundarias son combinaciones de varios elementos con estructura secundaria definida con una disposición geométrica característica
- La a hélice se estabiliza por enlaces de puente de hidrógeno intracatenarios de residuos próximos en la secuencia
- Estructura terciaria y desnaturalización
- El plegamiento de las proteínas, además de suponer una ventaja energética, permite que se aproximen las cadenas laterales de residuos distantes.
- Se puedan crear estructuras tridimensionales adecuadas para la interacción con otras moléculas
- En la célula, el proceso de plegamiento ocurre durante y después de que las proteínas son sintetizadas en los ribosomas
- Si se alteran las condiciones que mantienen estas fuerzas de atracción se produce desnaturalización de la proteína
- La presencia de sales o agentes como el ión guanidinio también puede afectar a las interacciones electrostáticas
- Uno de los agentes desnaturalizantes que se utiliza con más frecuencia es la urea
- Las interacciones hidrofóbicas se verán alteradas por sustancias que puedan establecer interacciones de la misma naturaleza con los residuos
- Uno de los agentes desnaturalizantes que se utiliza con más frecuencia es la urea
- La presencia de sales o agentes como el ión guanidinio también puede afectar a las interacciones electrostáticas
- Si se alteran las condiciones que mantienen estas fuerzas de atracción se produce desnaturalización de la proteína
- En la célula, el proceso de plegamiento ocurre durante y después de que las proteínas son sintetizadas en los ribosomas
- Se puedan crear estructuras tridimensionales adecuadas para la interacción con otras moléculas
- El plegamiento de las proteínas, además de suponer una ventaja energética, permite que se aproximen las cadenas laterales de residuos distantes.
- PRINCIPALES FUNCIONES DE LAS PROTEÍNAS
- Existen proteínas estructurales como el colágeno
- Está presente en tejido conjuntivo de huesos, dientes, cartílagos, tendo nes y córnea del ojo, y en tejidos epiteliales en los que desempeña un papel es tructural como proteína extracelular
- En el colágeno tipo I, el más abundante, sus moléculas se agrupan formando fibras de gran resistencia
- Está presente en tejido conjuntivo de huesos, dientes, cartílagos, tendo nes y córnea del ojo, y en tejidos epiteliales en los que desempeña un papel es tructural como proteína extracelular
- Proteínas integrales de membrana
- Proteínas de transporte y almacenamiento como la hemoglobina
- La hemoglobina es la proteína encargada de transportar el oxígeno en la sangre desde los pulmones al músculo, así como el de C02 y los H+ en la dirección opuesta.
- La hemoglobina es una proteína esférica compuesta por cuatro subunidades, dos cadenas a y dos cadenas f de estructura tridimensional semejante
- La hemoglobina es la proteína encargada de transportar el oxígeno en la sangre desde los pulmones al músculo, así como el de C02 y los H+ en la dirección opuesta.
- Proteínas implicadas en funciones tan importantes como la contracción muscular
- Prostaglandinas
- Proteínas con función de defensa como los anticuerpos
- Las inmunoglobulinas (Ig), producidas por los linfocitos, son un ejemplo de es tructura proteica con múltiples dominios que permiten el reconocimiento y la unión de moléculas ajenas al organismo
- Proteínas que participan en la recepción y transmisión de señales
- Existen proteínas estructurales como el colágeno
- NIVELES ESTRUCTURALES DE LAS PROTEÍNAS
- Son macromoléculas compuestas por una o varias cadenas polipeptídicas las cuales tienen secuencias específicas de aminoácidos unidos por enlaces
BIBLIOGRAFÍA
- 1. Feduchi E, Blasco I, Romero C, Yáñez. Bioquímica- Conceptos esenciales.
- 2. Aminoácidos y Proteínas [Internet]. [citado 4 de septiembre de 2020]. Disponible en: https://www.youtube.com/watch?v=nOD7YVC912k&feature=youtu.be&t=5
- 3. Porto A. Enlace peptídico [Internet]. 2019 [citado 4 de septiembre de 2020]. Disponible en: http://www.bionova.org.es/animbio/animplus/enlacepeptidico/enlacepeptidico.html
- 4. Porto A. proteoconfor [Internet]. 2019 [citado 4 de septiembre de 2020]. Disponible en: http://www.bionova.org.es/animbio/animplus/proteoconfor/proteoconfor.html
- 5. Porto A. Desnaturalización de las proteínas [Internet]. 2019 [citado 4 de septiembre de 2020]. Disponible en: http://www.bionova.org.es/animbio/animplus/proteodesnat/proteodesnat.html
- 7. Ácidos Nucleicos: Estructura química fundamental [Internet]. [citado 4 de septiembre de 2020]. Disponible en: https://www.youtube.com/watch?v=DRpxpgXJWdw&feature=youtu.be&t=1
- 8. Ácidos Nucleicos: Descripción de la estructura química [Internet]. [citado 4 de septiembre de 2020]. Disponible en: https://www.youtube.com/watch?v=O6HsJZzQhK0&feature=youtu.be&t=2
- 6. Porto A. Mecanismos del plegamiento proteico [Internet]. 2019 [citado 4 de septiembre de 2020]. Disponible en: http://www.bionova.org.es/animbio/animplus/proteinfolding/proteinfolding.html
- 9. ARNm: ARN mensajero [Internet]. [citado 4 de septiembre de 2020]. Disponible en: https://www.youtube.com/watch?v=ks0cTwDh9g4
Informações
- Descrição
- Biocelmol-Judy Quendi
- Criado por
- Judy Quendi
- Visualizações
- 6
- Avaliação
Mais sobre Aminoácidos, péptidos y proteínas